الموجز
ڤيروس كورونا المرتبط بالمتلازمة التنفسية الحادة الشديدة النوع الأول (SARS-CoV-1) هو ڤيروس أحادي السلسلة ينتمي إلى جنس ڤيروسات بيتاكورونا (Betacoronavirus) ضمن عائلة كوروناڤيريديه (Coronaviridae). وقد ظهر لأول مرة في تشرين الثاني/ نوڤمبر 2002.
يظهر الڤيروس مورفولوجيًا على هيئة جسيمات كروية مغلفة يتراوح قطرها بين 80 و90 نانومتر، ويتميز ببروزات سطحية مسمارية الشكل تعطيه شكل التاج. يدخل الڤيروس إلى الخلايا عبر ارتباطه بمستقبل الإنزيم المحول للأنجيوتنسين 2 (ACE2) الموجود على سطح الخلايا الرئوية، ويتكاثر في الخلايا الظهارية التنفسية والحويصلية الرئوية. توجد الڤيروسات الشبيهة بسارس بشكل طبيعي بين الخفافيش من جنس رينولوفوس (Rhinolophus)، إذ تنتقل بينها دون إحداث مرض ظاهر، وتُعدّ هذه الخفافيش خزانًا طبيعيًا للڤيروسات التاجية الشبيهة. وقد يحدث انتقالها إلى البشر عبر مضيفات وسيطة أو عبر اتصال مباشر مع الحيوانات البرية.
تتراوح فترة حضانة الڤيروس عند البشر بين 2 و14 يومًا، وتتضمن الأعراض الرئيسة حمّى تتجاوز 38 درجة مئوية، وسعالًا جافًا، وضيق تنفس تدريجيًا، قد يتطور إلى ذات رئة ومتلازمة الضائقة التنفسية الحادة نتيجة لاستجابة التهابية جهازية مفرطة. لم يتوفر خلال الوباء آنذاك علاج نوعي مثبت، واعتمدت الإدارة السريرية على الدعم التنفسي والأدوية المضادة للڤيروسات بشكل تجريبي. يشارك ڤيروس كورونا المستجد سارس كوڤ 2 (SARS-CoV-2) نحو 79.6 في المئة من تسلسله الجينومي مع سارس كوڤ 1 (SARS-CoV-1)، ويستخدم كلا الڤيروسين المستقبل الخلوي نفسه للدخول إلى الخلايا، وقد أسهمت الدراسات المبكرة حول سارس كوڤ 1 في تسريع فهم آليات العدوى والمناعة لدى النوع الثاني.
تصنيف ڤيروس سارس كوڤ 1
ڤيروس كورونا العامل الممرض المرتبط بالمتلازمة التنفسية الحادة الشديدة (Severe acute respiratory Syndrome Coronavirus)، يُختصر إلى سارس كوڤ (SARS-CoV) وقد أُعيد تسميته لاحقًا إلى SARS-CoV-1 بعد ظهور النسخة الثانية منه في نهاية عام 2019، وذلك للتمييز بين النوعين[1]. ينتمي الڤيروس إلى صنف (Class) بيزونيفيريسيتس (Pisoniviricetes)، ورتبة (Order) نيدوفيراليس (Nidovirales)، وعائلة (Famaily) الڤيروسات التاجية (Coronaviridae)، وجنس (Genus) الڤيروسات التاجية بيتا (Betacoronavirus)، وهو بذلك أحد أفراد المجموعة الثانية من ڤيروسات كورونا[2]. يُصنَّف وفق تصنيف بالتيمور ضمن المجموعة الرابعة لڤيروسات الـ RNA أحادية السلسلة القطبية. وقد أدرجته منظمة الصحة العالمية ضمن قائمة الممرضات ذات الأولوية القصوى التي قد تُسبب وباءات عالمية مستقبلية، وذلك في إطار خطة البحث والتطوير العاجل التي استُحدثت بعد وباء ڤيروس إيبولا (Ebola Virus Disease) [3].
تعود تسمية هذا الڤيروس إلى المتلازمة التي يسببها، وهي المتلازمة التنفسية الحادة الشديدة أو الوخيمة (Severe Acute Respiratory Syndrome)، التي تُختصر إلى سارس (SARS). أما تسمية فصيلة كورونافيريديه (Coronaviridae) فتعني التاجية أو المُكلِّلة، وذلك لأن الجسيمات الڤيروسية تبدو تحت المجهر الإلكتروني وكأنها مُحاطة بهالة أو تاج (Corona) من البروزات السطحية المسمارية الشكل. وقد أُطلق هذا الاسم لأول مرة في ستينيات القرن الماضي على ڤيروسات كورونا البشرية الأخرى، قبل ظهور سارس بعقود طويلة. وبعد اكتشاف الڤيروس المسبب لوباء 2002 و2003، أُطلق عليه اسم ڤيروس كورونا سارس، ثم أُعيد تسميته لاحقًا ليتماشى مع التصنيف الحديث[4].
تاريخ نشوء الڤيروس
ظهر ڤيروس سارس كوڤ 1 لأول مرة في تشرين الثاني/ نوڤمبر 2002 في مقاطعة غوانغدونغ جنوبي الصين، حيث سُجّلت حالات غير مألوفة من الالتهاب الرئوي الحاد لدى أفراد كانوا على اتصال مباشر مع حيوانات برية في أسواق للحيوانات الحية، وقد امتد الوباء ليشمل 29 دولة ومنطقة حول العالم، مسجلًا 8096 إصابة مؤكدة و774 حالة وفاة خلال الفترة من تشرين الثاني/ نوڤمبر 2002 إلى آب/ أغسطس 2003، بمعدل وفيات إجمالي يقترب من 9 في المئة. وقد كان معدل الوفيات أعلى بكثير بين الفئة العمرية التي تجاوزت الستين عامًا، إذ وصلت نسبة الوفيات في هذه الفئة إلى ما يقرب من 50 في المئة[5].
نجح فريق دولي بقيادة مركز مايكل سميث لعلوم الجينوم في فانكوڤر بكندا، بالتعاون مع مركز كولومبيا البريطانية لمكافحة الأمراض في نيسان/ أبريل 2003، في تحديد التسلسل الجينومي الكامل للڤيروس، وأكدت مراكز مكافحة الأمراض الأميركية (Centers for Disease Control and Prevention-CDC) والمختبر الوطني لعلم الأحياء المجهري في كندا الجينوم بشكل مستقل، وفي 16 نيسان/ أبريل 2003، أصدرت منظمة الصحة العالمية بيانًا رسميًا يُحدد ڤيروس كورونا المكتشف حديثًا بوصفه المسبب الرئيس لمتلازمة سارس، وقد أثبت علماء من هولندا أن الڤيروس يستوفي فرضيات كوخ، ما أكد أنه عامل ممرض حقيقي[6].
أما بخصوص المنشأ الحيواني للڤيروس، فقد أشارت الدراسات المبكرة إلى أنه قد انتقل من حيوانات برية تُباع في أسواق غوانغدونغ، وخاصة حيوان يدعى زباد النخل المقنع (Paguma larvata). ومع ذلك، أثبتت دراسات لاحقة أن الخفافيش الصينية هي الخزان الطبيعي الرئيس للڤيروس وأقاربه. ففي عام 2005، عزل باحثون ڤيروسات شبيهة بسارس من خفافيش حدوة الحصان الصينية، وأظهرت الدراسات التطورية أن الڤيروس تطور على مدى قرون طويلة في هذه الخفافيش قبل أن يتجاوز حاجز الأنواع إلى البشر، إما مباشرة أو عبر مضيفات وسيطة[7].
بنية الڤيروس
يظهر الڤيروس تحت المجهر الإلكتروني على هيئة جسيمات كروية مغلفة ذات بروزات سطحية مسمارية الشكل تُحيط بالجسيم لتشكل هالة أو تاجًا، ويتراوح قطر الجسيم الڤيروسي بين 80 و90 نانومتر، ويتكون الغلاف من غشاء ثنائي الطبقة من الدهون (lipid bilayer membrane) مشتق من غشاء الخلية المضيفة، ويحتوي الغلاف على زوج مميز من القشور الإلكترونية الكثيفة {{القشور الإلكترونية الكثيفة: (Electron-dense shells) طبقتان خارجيتان مرئيتان تحت المجهر الإلكتروني تحيطان بالغلاف الدهني للڤيروس وتعطيه مظهرًا مزدوجًا مميزًا، وهو مصطلح يستخدم في علم الڤيروسات.}}، وهو ما يُميز ڤيروسات كورونا عن غيرها من الڤيروسات المغلفة[8].
يتكون الڤيروس من أربعة بروتينات بنيوية (Structural proteins) رئيسة[9]:
- بروتين الشوكة (Spike protein-S) الذي يبرز من سطح الغلاف ويتحكم في ارتباط الڤيروس بالمستقبلات الخلوية ودمج الغشاء.
- بروتين الغشاء (Membrane protein-M) الذي يُحدث انحناءات في الغشاء الدهني ويسهل تجميع الجسيمات الڤيروسية.
- بروتين الغلاف (Envelope protein-E) الذي يشارك في تجميع الڤيروس وتحرره من الخلية المضيفة.
- بروتين القفيصة (Nucleocapsid protein-N) الذي يرتبط بالجينوم الڤيروسي، وهو من نمط الـرنا (RNA)، ويشكل القلب الداخلي للجسيم لتكوين قفيصة ذات تماثل حلزوني (Helical Symmetry)، فضلًا عن أدائه دورًا حيويًا في تنظيم عمليات نسخ الرنا وتثبيط الاستجابة المناعية للمضيف.
- ويحتوي الڤيروس أيضًا على بروتينات ملحقة (Accessory proteins) تؤدي أدوارًا في الهروب من الاستجابة المناعية للمضيف.
جينوم الڤيروس
يتكون الجينوم من سلسلة منفردة من الحمض النووي الريبي الرنا (Ribonucleic acid-RNA) موجبة القطبية، ويُعدّ جينوم SARS-CoV-1 واحدًا من أكبر جينومات ڤيروسات الرنا المعروفة، إذ يبلغ طوله حوالي 29.7 ألف نوكليوتيد، ويتضمن الجينوم 13 جينًا معروفًا يشفر 14 بروتينًا على الأقل[10].
تبدأ عملية التعبير الجيني بترجمة إطاري القراءة المفتوحين ORF1a وORF1b، اللذين ينتجان عديدي بروتين ضخمين pp1aوpp1ab، وتُعالج هذه البروتينات العديدة بوساطة بروتيازات ڤيروسية 3CLpro وPL2pro لتُنتج 16 بروتينًا غير بنيوي، وهي بروتينات وظيفية (Functional proteins) تشمل إنزيمات النسخ مثل بوليميراز الـرنا المعتمد على الرنا وإنزيم الهيليكاز ((Helicase. تلي هذه المنطقة جينات البروتينات البنيوية والملحقة، ويحمل الڤيروس ثمانية بروتينات ملحقة فريدة لا يوجد لها نظائر معروفة في الڤيروسات الأخرى، وتُعدّ وظائفها غير محددة بالكامل، ولكنها تُعدّ مُثبطات للاستجابة المناعية وتؤدي دورًا في إمراضية الڤيروس[11]. يظهر (الشكل 1) بنية الڤيروس.
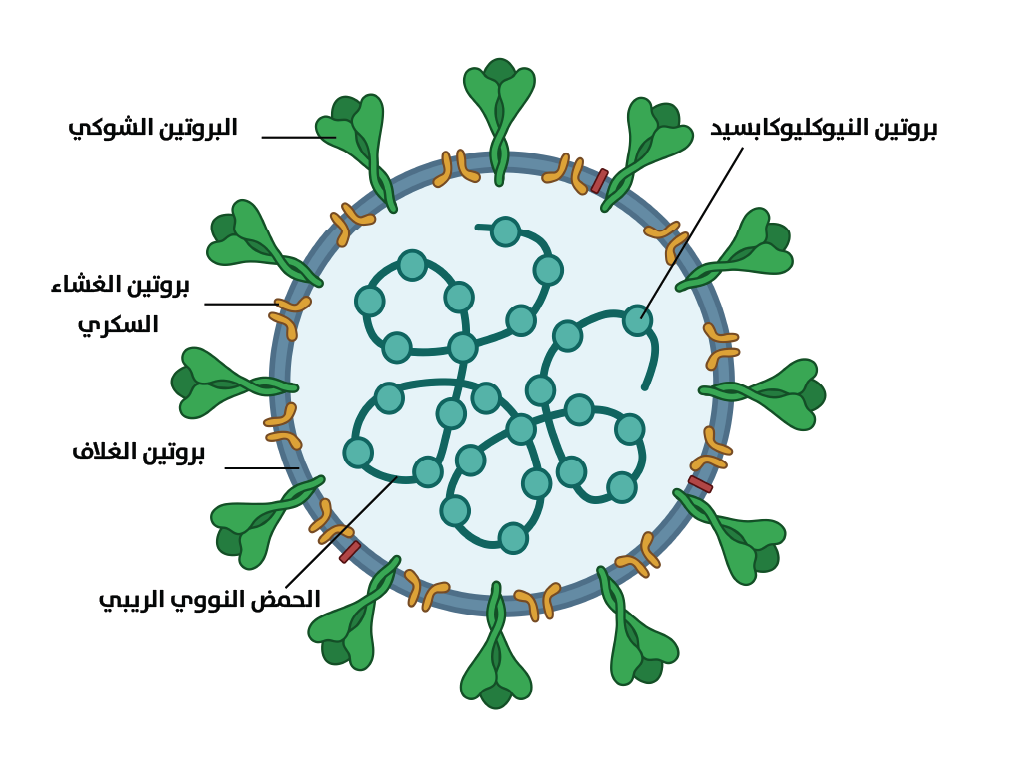 [الشكل 1] بنية الڤيروس سارس كوڤ 1
حذف الصورة؟
سيؤدي هذا إلى نقل الصورة إلى سلة المهملات.
دورة حياة ڤيروس سارس كوڤ 1
يستخدم الڤيروس مستقبل الإنزيم المحول للأنجيوتنسين 2 بوصفه المستقبل الرئيس الذي يرتبط به الڤيروس ليدخل إلى الخلية، وقد حُدّد هذا المستقبل لأول مرة عام 2003، إذ يُسهّل إنزيم البروتياز المُرتبط بالسيرين عملية انشقاق بروتين الشوكة ودمج الغشاء، ويمكن أن يستخدم الڤيروس أيضًا مسار الدخول المعتمد على تعديل درجة الحموضة وعلى إنزيمات الكاثيبسينات (Cathepsins) الموجودة في الإندوسومات (Endosomes) لتحفيز عملية اندماج الغشاء[12].
بعد دخول الڤيروس وتحرير الرنا الجينومي في السيتوبلازم، تُترجم العديدات البروتينية الكبيرة وتُعالج لتشكيل مركب النسخ المُعاد إنشاؤه على أغشية الشبكة الإندوبلازمية الخشنة (Rough Endoplasmic Reticulum)، ويُخلق هذا المركب سلاسل رنا سالبة الاتجاه، التي تُستخدم بوصفها قوالبًا لإنتاج نسخ جديدة من الجينوم الكامل وجزيئات الرنا الجينومية الفرعية. تُترجم البروتينات البنيوية في الشبكة الإندوبلازمية، حيث تجتمع مع الجينوم الرنا في الحويصلة الوسيطة بين الشبكة الإندوبلازمية وجهاز غولجي (Golgi apparatus) لتُشكّل جسيمات ڤيروسية ناضجة تُفرز خارج الخلية بالتحوصل الخلوي الخارجي وتعرف بعملية الإخراج الخلوي (الشكل 2).
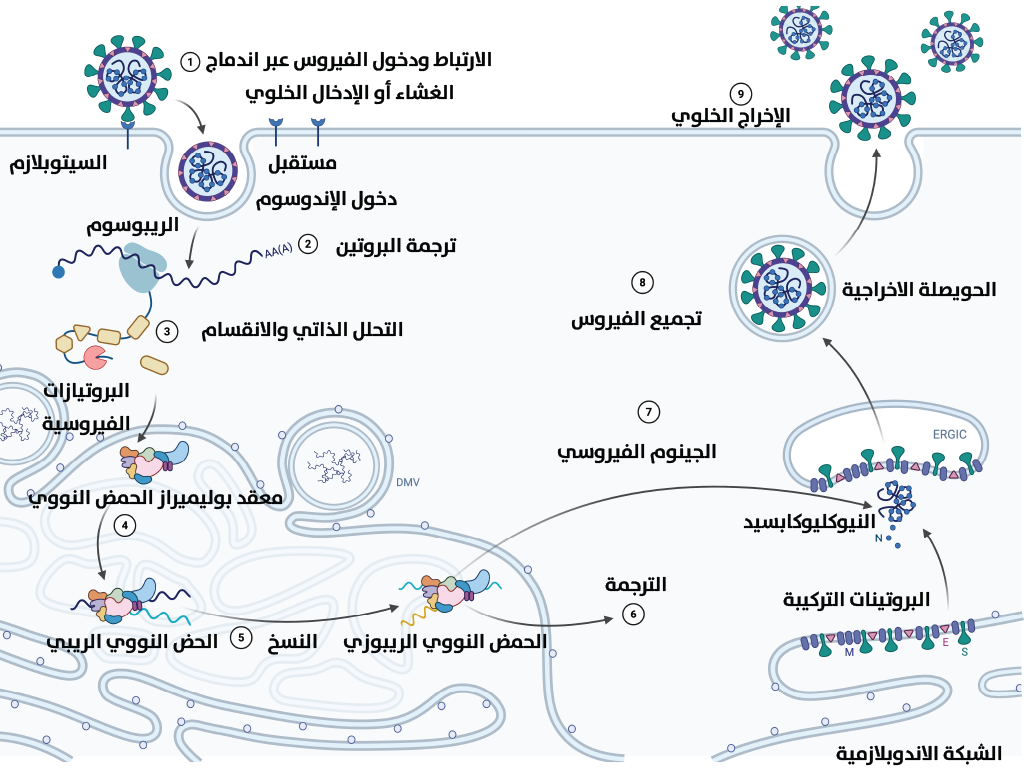 [الشكل 2] دورة حياة ڤيروس سارس كوڤ 1
حذف الصورة؟
سيؤدي هذا إلى نقل الصورة إلى سلة المهملات.
انتشار ڤيروس سارس كوڤ 1
ينتقل ڤيروس سارس كوڤ 1 بشكل رئيس عبر القطيرات التنفسية عند الاتصال المباشر مع الغشاء المخاطي للمريض، وعلى الرغم من أن الإسهال كان عرضًا شائعًا بين المرضى، فإن المسار الفموي-الشرجي {{المسار الفموي-الشرجي: (fecal-oral route) انتقال العدوى عبر المواد البرازية أو ملامسة الأسطح الملوثة بها.}} لم يُثبت كونه وسيلة انتقال فعالة. يتراوح عدد التكاثر الأساسي للڤيروس (R0) بين 2 و4 {{2 و4: المعدل المتوسط لعدد الحالات الثانوية الناتجة من حالة واحدة في مجتمع غير محصن.}} حسب الدراسات المختلفة، ما يشير إلى قابلية انتشار مرتفعة. وقد نجحت تدابير الوقاية الصارمة المفروضة في نيسان/ أبريل 2003 في خفض هذا الرقم إلى 0.4، ما ساهم في احتواء الوباء[13]. تتراوح فترة حضانة الڤيروس بين 2 و14 يومًا، بمتوسط 4 إلى 6 أيام، وهي فترة كافية لانتقال العدوى قبل ظهور الأعراض[14].
أعراض الإصابة
تبدأ الإصابة بڤيروس سارس كوڤ من خلال ظهور أعراض شبيهة بالإنفلونزا تشمل الحمى، وهي العرض الوحيد الشائع بين جميع المرضى وغالبًا ما تتجاوز 38 درجة مئوية، إضافة إلى الألم العضلي والصداع[15]. يعقب ذلك بعد 2 إلى 14 يومًا ظهور الأعراض التنفسية: السعال الجاف، والتهاب الحلق، وضيق التنفس التدريجي. قد يتطور المرض إلى ذات رئة ڤيروسية أو بكتيرية ثانوية، ومن الأعراض المميزة الأخرى انخفاض أعداد الخلايا اللمفاوية المناعية في الدم، وهو ما يُشير إلى الضعف المناعي الناجم عن العدوى[16].
الآلية الإمراضية
يستهدف الڤيروس الخلايا الظهارية التنفسية (Respiratory Epithelium)، والخلايا الظهارية الحويصلية الرئوية (Alveolar Epithelial Cells)، والخلايا البطانية الوعائية (Vascular endothelial cells)، والبلعميات (الخلايا البالعة) الكبيرة في الرئتين. يؤدي تكاثر الڤيروس في هذه الخلايا إلى موتها المبرمج الالتهابي {{الموت المبرمج الالتهابي: (Pyroptosis) شكل من أشكال الموت الخلوي المرتبط بالاستجابة الالتهابية، ويُطلق مواد تحفز الجهاز المناعي.}}، ما يُطلق أنماطًا جزيئية مرتبطة بالممرض (Pathogen-Associated Molecular Patterns-PAMPs) وأنماطًا جزيئية مرتبطة بالضرر (Damage-Associated Molecular Patterns- DAMPs)، وتستشعر الخلايا الظهارية والبلعميات الكبيرة هذه الجزيئات عبر مستقبلات التعرف على الأنماط الجزيئية (Pattern recognition receptors- PRRs)، ما يُحفز إفرازًا مفرطًا لوسائط السيتوكينات (Cytokines) والكيموكينات (Chemokines) الالتهابية. قد يؤدي هذا في الحالات الشديدة إلى تجمع الخلايا المناعية في الرئتين وحدوث تراكم للسيتوكينات يتسبب في متلازمة الضائقة التنفسية الحادة وفشل الأعضاء المتعدد[17].
علاوة على ذلك، يمتلك الڤيروس قدرة ملحوظة على إضعاف استجابة الإنترفيرون {{الإنترفيرون: (Interferon) بروتينات إشارات مناعية تُنتجها الخلايا للتحذير من العدوى الڤيروسية وتنشيط المناعة.}} من خلال بروتيناته التي تتداخل مع مسارات الإشارات المناعية[18].
العلاج
لم يتوفر علاج نوعي مضاد ڨيروسي مثبت الفعالية ضد SARS-CoV-1 خلال فترة الوباء، واعتمد العلاج على الإسعافات الأولية والدعم التنفسي، مع استخدام المضادات الحيوية لعلاج العدوى البكتيرية الثانوية[19]. وقد جرت محاولات لاستخدام مثبطات البروتياز الڤيروسية، مثل اللوبينافير، والريمديسيفير، ومشتقات الإنترفيرون. علاوة على ذلك، أُجريت تجارب على استخدام البلازما المُتعافية التي تحتوي على أجسام مضادة للڤيروس من الأشخاص الذين طوروا مناعة ضد المرض، وعلى الرغم من تطوير لقاحات تجريبية في المراحل ما قبل السريرية، توقّف تطوير اللقاحات التي وصلت إلى التجارب السريرية من الدرجة الأولى بعد احتواء الوباء[20].
دور ڤيروس سارس كوڤ 1 في نشوء ڤيروس سارس كوڤ 2
يشارك ڤيروس سارس كوڤ 2 حوالي 79.6 في المئة من تسلسله الجينومي مع ڤيروس سارس كوڤ 1، ويستخدم كلا الڤيروسين المستقبل الرئيس نفسه (ACE2) للدخول إلى الخلايا، وتبلغ درجة التشابه بين بروتينات الشوكة والغشاء والقفيصة والغلاف 76 في المئة، و90.1 في المئة، و90.6 في المئة، و94.7 في المئة على التوالي[21].
مع ذلك، يتمتع سارس كوڤ 2 بقدرة ارتباط أعلى بمستقبل ACE2 تصل إلى 10-20 ضعفًا مقارنة بسلفه، ما يفسر قابلية انتشاره الأعلى، ويحتوي سارس كوڤ 2 على موقع انشقاق للفيورين في بروتين الشوكة غير موجود في سارس كوڤ 1، وهو ما يُسهّل تفعيل البروتين ودمج الأغشية[22].
أدت دراسات سارس كوڤ 1 دورًا محوريًا في تسريع فهم العلماء لسارس كوڤ 2 عند ظهوره في كانون الأول/ ديسمبر 2019، فقد ساهمت المعرفة المتراكمة حول بنية بروتين الشوكة، وآلية الارتباط بمستقبل ACE2، والاستراتيجيات المناعية في تسريع تطوير اللقاحات والأدوية المضادة لڤيروس لسارس كوڤ 2 الذي تسبب بوباء كوڤيد-19. وقد أظهر سارس كوڤ 1 كيف يمكن لڤيروس مخزون في الخفافيش أن يتجاوز حواجز الأنواع ويُحدث وباء عالميًا، وهو درس ظلَّ محط اهتمام الباحثين بوصفه مسارًا مهمًا لفهم ڤيروسات كورونا الناشئة[23].
المراجع
Chu, C. M. et al. “Role of Lopinavir/Ritonavir in the Treatment Of SARS: Initial Virological and Clinical Finding.” Thorax, vol. 59, no. 3 (2004). pp. 252-256.
Drosten, Christian et al. “Identification of a Novel Coronavirus in Patients with Severe Acute Respiratory Syndrome.” New England Journal of Medicine. vol. 348, no. 20 (2003). pp. 1967-1976.
Fouchier, Ron A. M. et al. “Koch's Postulates Fulfilled for SARS Virus.” Nature. vol. 423, no. 6937 (2003). p. 240.
Guan, Yi et al. “Isolation and Characterizati of Viruses Related to the SARS Coronavirus from Animals in Southern China.” Science. vol. 302, no. 5643 (2003). pp. 276-278.
Hodgens, Alexander & Vikas Gupta. “Severe Acute Respiratory Syndrome.” in: StatPearls. Treasure Island, FL: StatPearls Publishing, 2023.
Hoffmann, Markus et al. “SARS-CoV-2 Cell Entry Depends on ACE2 And TMPRSS2 and is Blocked by a Clinically Proven Protease Inhibitor.”Cell. vol. 181, no. 2 (2020). pp. 271-280.
Jiang, Shibo, Yuxian He & Shuwen Liu et al. “SARS Vaccine Development.” Emerging Infectious Diseases. vol. 11, no. 7 (2005). pp. 1016-1020.
Ksiazek, Thomas G. et al. “A Novel Coronavirus Associated with Severe Acute Respiratory Syndrome.” New England journal of medicine. vol. 348, no. 20 (2003). pp. 1953-1966.
Lau, Susanna K. P. et al. “Severe Acute Respiratory Syndrome Coronavirus-Like Virus in Chinese Horseshoe Bats.” Proceedings of the National Academy of Sciences. vol. 102, no. 39 (2005). pp. 14040-14045.
Li, Fang et al. “Structure of SARS Coronavirus Spike Receptor-Binding Domain Complexed with Receptor.” Science. vol. 309, no. 5742 (2005). pp. 1864-1868.
Li, Wenhui et al. “Angiotensin-Converting Enzyme 2 Is A Functional Receptor for the SARS Coronavirus.” Nature. vol. 426, no. 6965 (2003). pp. 450-454.
Lipsitch, Marc et al. “Transmission dynamics and control of severe acute respiratory syndrome.” Science. vol. 300, no. 5627 (2003). pp. 1966-1970.
Marra, Marco A. et al. “The genome sequence of the SARS-associated coronavirus.” Science. vol. 300, no. 5624 (2003). pp. 1399-1404.
Nicholls, John M. et al. “Lung pathology of fatal severe acute respiratory syndrome.” The Lancet. vol. 361, issue 9371 (2003). pp. 1773-1778.
Peiris, Joseph Sriyal Malik et al. “Clinical Progression and Viral Load In a Community Outbreak of Coronavirus-Associated SARS Pneumonia: A Prospective Study.” The lancet. vol. 361, no. 9371 (2003). pp. 1767-1772.
Rota, Paul A. et al. “Characterization of a novel coronavirus associated with severe acute respiratory syndrome.” Science. vol. 300, no. 5624 (2003). pp. 1394-1399.
Zhou, Peng et al. “A Pneumonia Outbreak Associated with a New Coronavirus of Probable Bat Origin.” Nature. vol. 579, no. 7798 (2020). pp. 270-273.
[1] Marco A. Marra et al., “The genome sequence of the SARS-associated coronavirus,” Science, vol. 300, no. 5624 (2003), pp. 1399-1404.
[2] Paul A. Rota et al., “Characterization of a novel coronavirus associated with severe acute respiratory syndrome,” science, vol. 300, no. 5624 (2003), pp. 1394-1399.
[3] Christian Drosten et al., “Identification of a Novel Coronavirus in Patients with Severe Acute Respiratory Syndrome,” New England Journal of Medicine, vol. 348, no. 20 (2003), pp. 1967-1976.
[4] Yi Guan et al., “Isolation and Characterizati of Viruses Related to the SARS Coronavirus from Animals in Southern China,” Science, vol. 302, no. 5643 (2003), pp. 276-278.
[5] Alexander Hodgens & Vikas Gupta, “Severe Acute Respiratory Syndrome,” in: StatPearls (Treasure Island, FL: StatPearls Publishing, 2023)
[6] Ron A. M. Fouchier et al., “Koch's Postulates Fulfilled for SARS Virus,” Nature, vol. 423, no. 6937 (2003), p. 240.
7 Susanna K. P. Lau et al., “Severe Acute Respiratory Syndrome Coronavirus-Like Virus in Chinese Horseshoe Bats,” Proceedings of the National Academy of Sciences, vol. 102, no. 39 (2005), pp. 14040-14045.
[8] Marra, et al., op. cit.
[9] Fang Li et al., “Structure of SARS Coronavirus Spike Receptor-Binding Domain Complexed with Receptor,” Science, vol. 309, no. 5742 (2005), pp. 1864-1868.
[10] Marra et al., op. cit.
[11] Rota et al., op. cit.
[12] Markus Hoffmann et al., “SARS-CoV-2 Cell Entry Depends on ACE2 And TMPRSS2 and is Blocked by a Clinically Proven Protease Inhibitor,” Cell, vol. 181, no. 2 (2020), pp. 271-280; Wenhui Li et al., “Angiotensin-Converting Enzyme 2 Is A Functional Receptor for the SARS Coronavirus,” Nature, vol. 426, no. 6965 (2003), pp. 450-454.
[13] Marc Lipsitch et al., “Transmission dynamics and control of severe acute respiratory syndrome,” science, vol. 300, no. 5627 (2003), pp. 1966-1970.
[14] Joseph Sriyal Malik Peiris et al., “Clinical Progression and Viral Load In a Community Outbreak of Coronavirus-Associated SARS Pneumonia: A Prospective Study,” The lancet, vol. 361, no. 9371 (2003), pp. 1767-1772.
[15] Ibid.
[16] Thomas G. Ksiazek et al., “A Novel Coronavirus Associated with Severe Acute Respiratory Syndrome,” New England journal of medicine, vol. 348, no. 20 (2003), pp. 1953-1966.
[17] John M. Nicholls et al., “Lung pathology of fatal severe acute respiratory syndrome,” The Lancet, vol. 361, issue 9371 (2003), pp. 1773-1778.
[18] Ksiazek et al, op. cit.
[19] C. M. Chu et al., “Role of Lopinavir/Ritonavir in the Treatment Of SARS: Initial Virological and Clinical Finding,” Thorax, vol. 59, no. 3 (2004), pp. 252-256.
[20] Shibo Jiang, Yuxian He & Shuwen Liu et al., “SARS Vaccine Development,” Emerging Infectious Diseases, vol. 11, no. 7 (2005), pp. 1016-1020; Peiris et al., op. cit.
[21] Peng Zhou et al., “A Pneumonia Outbreak Associated with a New Coronavirus of Probable Bat Origin,” Nature, vol. 579, no. 7798 (2020), pp. 270-273.
[22] Hoffmann et al., op. cit.
[23] Li et al, op. cit.
