الموجز
جينيفر داودنا (Jennifer Anne Doudna، 1964- ) عالمة كيمياء حيوية أميركية وأستاذة في قسم الأحياء الخلوية والجزيئية في جامعة كاليفورنيا في بيركلي، تشغل كرسي المستشار لي كا شينغ في العلوم الطبية الحيوية والصحية (Li Ka Shing Chancellor's Chair in Biomedical and Health Sciences). وهي عضو منتخب في أكاديميات علمية عدة وباحثة في معهد هوارد هيوز الطبي {{معهد هوارد هيوز الطبي: (HHMI) مؤسسة أميركية غير ربحية أسسها هوارد هيوز عام 1953 تُعنى بدعم الأبحاث الطبية الحيوية والأعمال الخيرية. يُدير المعهد مجمّعَ جانيليا للأبحاث ويدعم التعليم العلمي ويُطوّر البحوث البيولوجية الأساسية. يقع مقره الرئيس في مدينة تشيفي تشيس في ولاية ماريلاند.}} منذ عام 1997. حازت على جائزة نوبل في الكيمياء عام 2020 مناصفة مع العالمة الفرنسية إيمانويل شارپنتييه، لتطويرهما تقنية تحرير الجينوم المسمّاة كريسبر كاس9 (CRISPR-Cas9)، وهي تقنية رخيصة نسبيًا وسهلة التصنيع وعالية الدقة، يمكن من خلالها استهداف الأعطاب الجينية في الحمض النووي منزوع الأكسجين وتصحيحها.
نشأتها وتعليمها
وُلدت جينيفر داودنا في 19 شباط/ فبراير 1964 في مدينة واشنطن بالولايات المتحدة الأميركية، ولدت لأبوين أكاديميين، هما مارتن ودوروثي داودنا، إذ حمل والدها شهادة الدكتوراه في الأدب الإنكليزي وحصلت أمها على شهادة الماجستير في التربية، وكانت جينيفر الأخت الكبرى لإيلين وسارة. انتقلت عائلتها إلى مدينة هيلو في هاواي في آب/ أغسطس 1971، عندما كانت في السابعة من عمرها، عقب بدء والدها وظيفته أستاذًا مساعدًا في الأدب الأميركي في جامعة هاواي. وحصلت والدتها، التي كانت مهتمة بالتاريخ الآسيوي، على درجة ماجستير ثانية في التاريخ الآسيوي، وبدأت التدريس في كلية مجتمع محلية. تُرجع داودنا حبها للعلوم إلى طبيعة نشأتها بوصفها "هاولي" (Haole) -وهو مصطلح عامي هاوائي لغير السكان الأصليين- في هاواي، وهو ما عزز لديها الشعور "بالغربة" الذي دفعها لاحقًا للمخاطرة في مسيرتها العلمية. كذلك، فإنها تنسب الفضل في شغفها إلى خلفية والديها الأكاديمية والبيئة المحيطة بها، فقد كان منزل العائلة مليئًا بالكتب التي تتناول العلوم والتاريخ الطبيعي. وقد كرّست داودنا معظم أمسيات طفولتها مع عائلتها للقراءة والنقاش، وقضت عطلات نهاية الأسبوع في استكشاف الطبيعة المتنوعة والخلّابة في هاواي[1].
بدأ شغفها في العلوم وإلهامها بالبحث العلمي قراءة كتاب وهي ما زالت في الصف السادس، هو كتاب اللولب المزدوج (The Double Helix) (1968) للعالم جيمس واطسون (James Watson)، الذي تحدث فيه عن رحلة اكتشاف بنية الحمض النووي منزوع الأكسجين (Deoxyribonucleic acid - DNA) بوساطة فرنسيس كريك (Francis Crick) وجيمس واطسون، الحائزين جائزة نوبل عام 1962[2]. وتقول جينيفر إنها أدركت للمرة الأولى أنه بإمكان امرأة أن تكون عالمة عظيمة عندما تعلمت عن روزاليند فرانكلين (Rosalind Franklin) التي كانت تجاربها في تصوير الحمض النووي عن طريق الأشعة السينية سببًا أساسيًا في فهم واطسون وكريك لهيكلية الأحماض النووية اللولبية. ذكرت جينيفر أنها حلمت منذ مراهقتها بأن تكون عالمة، وكانت على نحو أساسي معجبة باكتشاف العلماء للظواهر الطبيعية وتفسيرهم لها بصورة لم تخطر لأحد مسبقًا[3].
تزوجت جينيفر داودنا من شريكها البحثي جيمي كيت عام 2000 وأنجبت منه ابنهما آندرو عام 2002[4].
مسارها العلمي وإنجازاتها
التحقت داودنا بتخصص الكيمياء في جامعة بومونا (Pomona College) في كاليفورنيا عام 1981، بالرغم من أن مرشدها في المدرسة الثانوية "قد ثبّطها بشدة" عن متابعة تخصص الكيمياء أو حتى الطموح لتكون عالمة. وفي الصيف الذي أعقب أول سنة دراسية، عادت إلى هيلو وعملت في مختبر صديق العائلة، هو دون هيميس (Don Hemmes)، أستاذ علم الأحياء الذي كان وقتئذٍ يدرّس آلية إصابة فطريات فايتوفثورا بالميڤورا (Phytophthora palmivora) لفاكهة البابايا، وهي مشكلة كانت تعانيها هاواي. وتُعد تلك التجربة الأولى التي تنغمس فيها داودنا في العمل العلمي المستقل، وقد قالت عنها: "كانت تلك أول مرة أتذوق فيها إثارة الاكتشاف العلمي"[5].
تخرجت داودنا بتفوق حاملة شهادة البكالوريوس في تخصص الكيمياء في جامعة بومونا عام 1985، والتحقت في السنة نفسها بكلية الطب في جامعة هارڤرد (Harvard Medical School) في مسار درجة الدكتوراه[6]، وحصلت عليها في الكيمياء البيولوجية والصيدلة الجزيئية عام 1989[7].
أطروحة الدكتوراه
خلال آخر سنة دراسية لها في جامعة بومونا، عملت داودنا في مختبر مرشدتها وأستاذة الكيمياء الحيوية، شارون بانسينكو (Sharon Panasenko)، وبدأت في دراسة التواصل الخلوي بين الخلايا البكتيرية التي تسمح لها بالتنظيم على شكل مستعمرات بكتيرية {{المستعمرات البكتيرية: (Bacterial colonies) هي كتل بكتيرية مرئية بالعين المجردة، تنشأ من خلية سلفية واحدة تنمو على وسط زراعة صلب. تتميز هذه المستعمرات بخصائص مورفولوجية مميزة (الحجم، والشكل، واللون، والارتفاع، والحافة، والملمس) تُستخدم في التعريف الميكروبيولوجي. تتوسع المستعمرات بالانشطار الثنائي، وقد تمثل مجموعات استنساخية مع أن الطفرات قد تُحدث تباينًا.}}[8]. كانت تلك التجربة أول مناسبة يُذكر اسم داودنا في ورقة علمية نشرتها بانسينكو لاستخدامها طرقًا غير تقليدية في تنمية البكتيريا.
وفي عام 1986، انضمت إلى مختبر عالم الجينات جاك زوستاك (Jack Szostak)، الحائز على جائزة نوبل في الفيزيولوجيا أو الطب عام 2009، إذ كان يدرس وقتئذٍ تغيير موضوع أبحاثه من الحمض النووي منزوع الأكسجين إلى الحمض النووي الريبي (Ribonucleic acid - RNA)[9]. وكانت له فرضية أن الحمض النووي الريبي قد سبق الحمض النووي منزوع الأكسجين في أصل الحياة على الكرة الأرضية. أثارت تلك الفرضية آنذاك الاهتمام من حيث اعتمادها على قدرة الحمض النووي الريبي على القيام بعمليات حيوية، إذ إنّ الأحماض النووية القادرة على التضاعف الذاتي تعتبر حلقةَ الوصل بين المواد الكيميائية الأولية والخلايا الحيوية. وبما أن نظريته آنذاك تفترض إمكانية عمل الحمض النووي الريبي إنزيمًا أو عاملًا محفزًا، كان لا بد من إجراء تجارب تختبر هذه القدرة.
التحقت داودنا في تلك الفترة بالمختبر ودرست من خلال تجاربها الإنترونات ذاتية الوصل {{الإنترونات ذاتية الوصل: (self-splicing introns) هي جزيئات من الحمض النووي موجودة في النسخة الأولية للحمض النووي الريبي المرسال ولا تترجم إلى بروتينات، بل تُقطع ذاتيًا قبيل بدء الترجمة ويوصل طرفا الإكسونات المحيطة بها.}}. وأكملت أطروحة الدكتوراه في المختبر ذاته، وطوّرت إنترونًا من نوع من الأوليات (protozoa) يسمى رباعيات الغشاء {{رباعيات الغشاء: (Tetrahymena) جنس وحيد الخلية من هدبيات المياه العذبة، يتميز بجهاز فموي معقد، ونواة مزدوجة (نواة كبيرة ونواة صغيرة)، وأنماط تزاوج متعددة. يُستخدم على نطاق واسع في علم الأحياء الخلوي والجزيئي بوصفه كائنًا نموذجيًا، وقد مكّن من اكتشاف الريبوزيمات والتيلوميراز.}} كان قد عُزِل سابقًا وأُثبتت فاعليته بوصفه أول جزيء حمض نووي ريبي يمكنه أداء عمليات حيوية وبيوكيميائية ويكون قادرًا على القطع الذاتي. وقد طَوّرت داودنا التجارب لتسمح بتخطي مشكلات عدة قد واجهت الباحثين مسبقًا في مسألة ضرورة وجود قالب في جزيء آخر، وضرورة دقّة القالب المستعمل. إضافة إلى أنها أثبتت فاعلية الإنترون بلحم عدد من الأوليغونيكلوتيدات معًا، وطرحت تحديات عدة يستوجب حلها مستقبلًا، وقد نشرت عن تلك المسألة بحثًا في مجلة الطبيعة (Nature)[10].
ظلّت داودنا في مختبر زوستاك سنتين بعد حصولها على درجة الدكتوراه تعمل باحثةً ما بعد الدكتوراه[11]، وقد كانت تلك المرحلة بداية مسيرة علمية ريادية في مجالها، بالرغم من تخوفاتها في البداية من الانخراط في دراسة الحمض النووي الريبي عوضًا عن الحمض النووي الريبي منزوع الأكسجين، خصوصًا في إطار تركيز الإعلام والمجتمع العلمي وقتئذٍ على مشروع الجينوم البشري {{مشروع الجينوم البشري: (1990-2003) مبادرة بحثية دولية لتحديد تسلسل الحمض النووي البشري الكامل وتحديد الجينات جميعها. وقد أنتج المشروع جينومات مرجعية عالية الجودة، وطوّر تقنيات التسلسل والمعلوماتية الحيوية، ومكّن من إجراء دراسات الجينوم المقارنة، ووضع سياسات البيانات المفتوحة، ما أثر كثيرًا في الطب وعلم الأحياء وعلم الوراثة من خلال توفير موارد جينومية متاحة للعامة.}} الذي أنشئ عام 1990 وأسهم في الكشف عن خريطة الجينوم البشري {{خريطة الجينوم البشري: هي تمثيل مُرتّب للجينات والعلامات الجينية على طول الكروموسومات البشرية، تُبنى من خلال الربط والرسم الفيزيائيين. تُحدد هذه الخريطة المواقع والمسافات، وتُرشد التسلسل واكتشاف المتحورات، وتُمكّن من تحديد مواقع جينات الأمراض ومقارنة الجينوم والشرح الوظيفي. وقد سبقت الخرائط الأساسية مشروع الجينوم البشري واستكملته.}} كاملةً[12].
وفي أثناء عملها في مختبر زوستاك، أسهمت داودنا في هندسة حمض نووي ريبي محفز ذاتي التضاعف (ريبوزيم، Ribozyme)، ما عزز فرضية أن الحمض النووي الريبي، وليس الحمض النووي الريبي منزوع الأكسجين هو مصدر الحياة الباكرة، إذ أثبت أن الحمض النووي الريبي لا يخزن المعلومات الجينية فحسب، بل يحفز التفاعلات الكيميائية أيضًا التي تساعد في تكرار هذه المعلومات، وهي سمة أساسية للحياة[13].
جامعة كولورادو
استكمالًا لأبحاثها في مرحلة ما بعد الدكتوراه، انتقلت داودنا عام 1991 إلى جامعة كولورادو حيث التحقت بمختبر توماس تشيك (Thomas Cech)، الذي كان قد حاز جائزة نوبل في الكيمياء عام 1989 بسبب إثباته واكتشافه لطبيعة الحمض النووي الريبي التحفيزية[14]، وقد تناسب فضولها الذي كان يتمحور حينئذٍ حول هيكلية إنزيمات الحمض النووي الريبي التي تمكنه من تحفيز القطع/ الوصل الذاتي، مع طبيعة عمل المختبر[15]. بدأت العمل بهدف الحصول على البنية الذرية لـ الأحماض النووية الريبية بالتعاون مع فريق من العلماء. كان القليل معروفًا وقتئذٍ عن طبيعة طيّ الأحماض النووية الريبية وبنيتها الذريّة، ما جعل من هذا المشروع جسيمًا بطبيعته ومشجعًا في الوقت ذاته. كذلك، فإن طبيعة الحمض النووي الريبي غير مستقرة تطرح تحديات كثيرة من حيث تحديد بنيته عن طريق التصوير بالأشعة السينية (X-ray crystallography)، فبالرغم من نجاح داودنا وفريقها من بلورة إنزيمات الحمض النووي الريبي، كانت هيكليته سرعان ما تتدمر إثر تعريض البلورات للأشعة السينية.
وخلال لقاء وصفته داودنا بالمصادفة الحسنة في بولدر مع عالِمي الكيمياء الحيوية من جامعة ييل، توماس ستايتز (Thomas Steitz)، الذي حصل لاحقًا على جائزة نوبل في الكيمياء عام 2009، وزوجته جون ستايتز (Joan Steitz)، وهما عالمان كانا وقتئذٍ في إجازة تفرغ علمي في جامعة كولورادو، تعرفت داودنا إلى تقنية التبريد العميق {{التبريد العميق: (Cryogenic cooling) هو عملية الوصول إلى درجات حرارة منخفضة للغاية والحفاظ عليها باستخدام مواد مبردة (مثل النيتروجين السائل أو الهيليوم) أو ثلاجات ذات دورة مغلقة. يُمكّن هذا التبريد من تحقيق الموصلية الفائقة وتوفير كاشفات منخفضة الضوضاء والحفاظ على المواد من خلال تقليل الطاقة الحرارية.}} لبلورات إنزيماتالأحماض النووية الريبية قبل التصوير بالأشعة السينية، فتجميد البلورات بسرعة في النيتروجين السائل {{النيتروجين السائل: (N₂(l)) هو غاز تبريد خامل عديم اللون، يغلي عند درجة حرارة °196- (77 كلڤن). يُنتَج بالتقطير التجزيئي للهواء. يُتيح التبريد السريع والحفظ بالتبريد وتجارب الموصلية الفائقة والأجواء الخاملة. يُخزَّن في أوعية ديوار، ويتمدد بمقدار 700 مرة تقريبًا عند التبخر.}} يحفظ استقرار البنية الذرية بعد التعريض للأشعة السينية[16].
جامعة ييل
إثر حماسها لاستعمال تلك التقنية، انضمت داودنا إلى هيئة التدريس في جامعة ييل عام 1994 أستاذة مساعدة في الفيزياء الحيوية الجزيئية والكيمياء الحيوية. ورافقها في انتقالها جيمي كيت طالبًا في الدراسات العليا في مختبرها الجديد، الذي أصبح زوجها لاحقًا. كان لمجموعتها البحثية في جامعة ييل دورٌ محوري في توضيح البنية ثلاثية الأبعاد لجزيئات الحمض النووي الريبي المعقدة. وباستخدام دراسة البلورات بالأشعة السينية بعد التبريد العميق للبلورات، أنتجت داودنا خرائط مفصلة لكثافة الإلكترونات، كشفت عن الموقع الدقيق لكل ذرة في إنترون المجموعة الأولى ذاتي الوصل المستخرج من رباعيات الغشاء المحبة للحرارة (Tetrahymena thermophila). سمح هذا لفريقها ببناء نموذج هيكلي على المستوى الذري، يوازي بأهميته نموذج اللولب المزدوج للحمض النووي (نموذج واطسون وكريك)، وقد كشف هذا الهيكل عن آلية الوراثة الجينية.
أظهر نموذج داودنا كيفيّة طيّ الحمض النووي الريبي في بنية ثلاثية الأبعاد معقدة قادرة على القيام بوظائف إنزيمية، مثل الوصل الذاتي والتضاعف[17]. أتاح هذا الاكتشاف المنهجي لداودنا وفريقها تحديد الهيكل ثلاثي الأبعاد لجزء من إنزيم الحمض النووي الريبي، ونشروا هذا الاكتشاف في ورقة علمية بارزة في مجلة العلم (Science) عام 1996.[18] اعتُبر هذا العمل إنجازًا علميًا بارزًا، إذ وفّر أول تصور تفصيلي لريبوزيم كبير ومنظم، وقدّم رؤًى قيّمة حول آليته التحفيزية. وقد لاقت هذه النتائج استحسانًا واسعًا لإمكاناتها في إثراء الاستراتيجيات المستقبلية لتعديل الريبوزيمات؛ بُغية إصلاح الجينات المعطوبة.
انضمت داودنا إلى معهد هوارد هيوز الطبي (HHMI) بوصفها باحثة عام 1997. وفي عام 2000، ترقّت لدرجة الأستاذية وعُيِّنت أستاذة هنري فورد للفيزياء الحيوية الجزيئية والكيمياء الحيوية. ويُشار إلى أن داودنا انتخبت لعضوية الأكاديمية الوطنية للعلوم (National Academy of Sciences) في أميركا عام 1999.
جامعة كاليفورنيا بيركلي
انتقلت داودنا إلى الشاطئ الغربي من الولايات المتحدة حيث بدأت عملها أستاذة في كلية الكيمياء في جامعة كاليفورنيا بيركلي عام 2002، وقد انضمت إلى مختبر لورنس بيركلي الوطني (Lawrence Berkeley National Laboratory) مع زوجها وشريكها البحثي جيمي كيت، ما منحها فرصة العمل مع أكثر تقنيات العالم تطورًا في مجال التصوير بالأشعة السينية.
إنزيمات دايسر
بالتزامن مع بدء عملها في جامعة كاليفورنيا بيركلي عام 2002، انتشر ڤيروس سارس-كوڤ-1 (ڤيروس كورونا الأول) في الصين، وهو ڤيروس يملك حمضًا نوويًا ريبيًا ويسبب المتلازمة التنفسية الحادة الوخيمة (Severe acute respiratory syndrome - SARS). ركّزت داودنا أبحاثها على آليات تداخل الحمض النووي الريبي {{تداخل الحمض النووي الريبي: (RNA interference - RNAi) هو مسار خلوي محفوظ يسكت الجينات باستخدام الحمض النووي الريبي الصغير.}}، وهي منظومة مناعية خلوية طبيعية تُعطّل ترجمة البروتينات الڤيروسية عبر استهداف الحمض النووي الريبي المرسال؛ ما دفعها لتركيز أبحاثها على تدخل الحمض النووي الريبي، وهي عملية دفاع مناعية تقوم بها الخلايا طبيعيًا عن طريق الارتباط بنسخة الحمض النووي الريبي المرسال ومنع تصنيع البروتين الڤيروسي. في صلب هذه المنظومة، يقطّع إنزيم دايسر (Dicer) اللولب المزدوج للحمض النووي الريبي إلى جزيئات قصيرة محددة الطول من الحمض النووي الريبي الحمض النووي الريبي المتداخل الصغير {{الحمض النووي الريبي المتداخل الصغير: (siRNA) هو حمض نووي ريبي ثنائي السلسلة، يتكون من حوالي 21 إلى 23 نوكليوتيدًا، ويُنتجه إنزيم دايسر من حمض نووي ريبي ثنائي السلسلة أطول. وعند تحميله في مركب إسكات مستحث بالرنا (RISC) باستخدام بروتين أرغوناوت (Argonaute)، يُؤدي إلى تكسير الحمض النووي الريبي المرسال. ويثبط استعمالُ الحمض النووي الريبي المتداخل الصغير الجيناتِ المستهدفةَ ويستخدم في تطبيقات بحثية وعلاجية متعددة.}}، التي تُحمَل لاحقًا ضمن مركّب إسكات مستحث بالرنا (ريسك، RISC) لتوجيه إسكات الرسائل الڤيروسية. أسهمت داودنا إسهامًا محوريًا في كشف البنية والمجالات الوظيفية لدايسر؛ إذ يضم مجال PAZ الذي "يمسك" بطرف الرنا، ومجالي ريبونيوكلياز 3 (RNase III) اللذين يؤدّيان دور "مسطرة" تضبط المسافة وموضع القطع بدقة. قدّم هذا الفهم البنيوي إطارًا ميكانيكيًا راسخًا لفهم آليات تدخّل الحمض النووي الريبي ومهّد لتطبيقاتها في هندسة الجينات.
مراحل اكتشاف نظام كريسبر
رصد تكرارات كريسبر للمرة الأولى
في أواخر التسعينيات من القرن العشرين، اكتشفت تكرارات قصيرة في الحمض النووي منزوع الأكسجين للمرة الأولى[19] التي سُميت لاحقًا كريسبر، وهي اختصار لتكرارات عنقودية متناظرة قصيرة منتظمة التباعد (Clustered Regularly Interspaced Short Palindromic Repeats - CRISPR). لم يكن دور كريسبر واضحًا حينئذٍ، لكن العالم الإسباني فرانسيسكو موخيكا أصرّ على أنه لا بد من وجود دور أساسي للكريسبر، إذ إنه بالرغم من أن التكرارات في التسلسلات النيكليوتيدية في الحمض النووي ليست بجديدة، سواء في الكائنات حقيقية أم في بدائية النواة، لم يُرصد من قبل وجود تكرارات بهذا التنظيم أو الانتشار، فإن كريسبر يوجد في أكثر من نصف الكائنات بدائية النواة المعروفة، وتتشارك فيها العتائق والبكتيريا. ظل دور كريسبر لغزًا حتى اكتشف موخيكا أن الفواصل (Spacers) في الحمض النووي البكتيري تتطابق مع تسلسلات الحمض النووي للعاثيات (Bacteriophages)، وهي ڤيروسات تتطفل على البكتيريا وتتكاثر داخلها. وتُستخدم العاثيات على نطاق واسع في الأبحاث البيوكيميائية والوراثية والجزيئية. ورأى أن الجينات لا بد أن تكون جزءًا من نظام "مناعي" غير مكتشف يساعد البكتيريا في مكافحة العدوى. أثار هذا الأمر استغراب المجتمع العلمي، ورفضت أربع مجلات علمية مختلفة دراسة موخيكا التي اقترحت وجود هذا النظام المناعي البكتيري[20]، إلى أن نشرها أخيرًا عام 2005[21]. في السنوات التي تلت نشر موخيكا، بدأ الباحثون تدريجيًا فهم آلية عمل هذا النظام الدفاعي[22].
كريسبر بوصفه آلية مناعية تكيفية
إثر أبحاث داودنا على إنزيمدايسر وآليات تداخل الحمض النووي الريبي عامة، تواصلت معها عالمة الميكروبات والجينات جيليان بانفيلد وبدأتا رحلة مشروع البحث عن آلية عمل كريسبر في مقهى محلّي[23]. كانت بانفيلد تدرس الكائنات الدقيقة التي تعيش في البيئات القاسية، ورصدت تسلسلات كريسبر في الحمض النووي منزوع الأكسجين في تلك الخلايا، في وقت كان دور كريسبر ما يزال مجهولًا. وأظهرت أبحاث بانفيلد أن مناطق كريسبر سريعة التطور في كروموسوم الخلايا البكتيرية، وبالرغم من تطابق التكرارات العنقودية المتناظرة، كانت الفواصل متغيرة، ما أكد لها أن كريسبر له دور في استجابة البكتيريا لظروف بيئية معينة كان لا بد من اكتشافها. وثمة نظريات عدّة حول دور كريسبر، وظنت داودنا وبانفيلد أنه من الممكن النظر إلى كريسبر بوصفه نظيرًا لآلية الدفاع المناعي عن طريق تداخل الحمض النووي الريبي في الخلايا حقيقية النوى.
كريسبر يعمل على الحمض النووي منزوع الأكسجين (DNA)
في عام 2008، نظّمت جينيفر داودنا برفقة بانفيلد ومارك يونغ (Mark Young) من جامعة ولاية موناتا (Montana State University) أول مؤتمر عالمي عن أبحاث كريسبر[24]. وقد انتشر في السنة ذاتها بحث حول نظام كريسبر وعلاقته بنقل الجينات الأفقي {{نقل الجينيات الأفقي: (Horizontal gene transfer) هو حركة المادة الوراثية بين الكائنات الحية غير المرتبطة تناسليًا (ليست بين الآباء والأبناء)، بما في ذلك انتشار جينات مقاومة المضادات الحيوية. يعتبر النقل الجيني الأفقي عملية تطورية شاملة تؤدي إلى توزيع الجينات بين سلالات بدائية النواة المختلفة.}} في بكتيريا العنقودية البشروية (Staphylococcus epidermidis)، إلى جانب عرض أدلّة جديدة حول آلية عمله. وأظهر البحث أيضًا أن نظام كريسبر يستهدف الحمض النووي منزوع الأكسجين مباشرة، ومن ثم، يختلف اختلافًا أساسيًا عن آلية تداخل الحمض النووي الريبي[25]. عُدّ هذا الاكتشاف ذا أهمية بالغة؛ لأنه فتح الآفاق لدراسات مستقبلية حول إمكانية استغلاله بوصفه أداة تعديل جيني. وكان لا بدّ أن تُدرس آلية تعرّف نظام كريسبر إلى قِطَع الحمض النووي منزوع الأكسجين التي يَستوجب قطعها، وآلية القطع ذاتها.
كريسبر رنا يعمل دليلًا لتوجيه نظام كريسبر نحو التسلسلات الجينية الدخيلة
انصب الاهتمام على سد ثغرات فهم نظام كريسبر في المجتمع العلمي على مستوى عالمي. وكان مختبر داودنا قد بدأ تطوير تقنيات تنقية مجموعة من بروتيناتكاس {{بروتينات كاس: (CRISPR associated proteins, Cas) عائلة من الإنزيمات الموجودة في البكتيريا والعتائق، وهي جزء أساسي من نظام كريسبر-كاس، الذي يعمل بوصفه دفاعًا مناعيًا تكيفيًا ضد الڤيروسات.}} لدراستها فرديًا، وهي إنزيمات (Endonucleases) تكسّر الأحماض النووية الريبية. وحُلّت البنية الذرية لإنزيم من هذه العائلة وهو كاس6ف (Cas6f/Csy4) عن طريق التصوير بالأشعة السينية وإنتاج أول نموذج هيكلي بلّوري بمقياس ذرّي لذلك الإنزيم، ما كشف عن أسس التفاعلات بين إنزيم كاس6ف والحمض النووي الريبي، وكشف عن دور بنية الحلقة الجذعية في الإنزيم (stem-loop). يعتمد كاس6ف الحمضين الأمينين سيرين (Serine) وهستيدين (Histidine) المحفوظين عبر التطوّر (Evolutionarily conserved) لتحفيز موقعه النشط وإجراء عملية القطع. واستطاع مختبر داودنا إثبات أن الخلية البكتيرية عند مهاجمة ڤيروس لها تُخزن أجزاءً من تسلسلات الجينات الدخيلة بوصفها فواصل إضافية في جزء كريسبر في حمضها النووي منزوع الأكسجين، الذي يُترجم إلى حمض نووي ريبي.
وأوضحت ورقة نُشرت في مجلة Science أن دور بروتين كاس6ف يتمحور حول قطع الحمض النووي الريبي الذي تُرجِم إلى أجزاء أصغر تسمى الحمض النووي الريبي كريسبر أو كريسبر رنا {{كريسبر رنا: (crRNA) هو نوع من جزيئات الحمض النووي الريبي المهمة في الجهاز المناعي للبكتيريا والعتائق (كريسبر كاس). يوجه كريسبر رنا بروتينات كاس إلى الحمض النووي الغريب (مثل الحمض النووي للڤيروسات الغازية) لتعريفه وتكسيره. في تقنيات تحرير الجينوم، يُستخدم كريسبر رنا اصطناعي مع الحمض النووي الريبي المنشط لكريسبر تبادليًا (tracrRNA) المكمّل له لإنشاء جزيء رنا دليل يوجه إنزيم كاس9 إلى موقع محدد على الحمض النووي لتحريره.}} تعمل دليلًا لتوجيه نظام كريسبر نحو تسلسلات الحمض النووي الدخيلة لإسكاتها[26].
دور تسلسل پام وبروتين كاس9
أظهرت الأبحاث ضرورة وجود تسلسل قصير من الحمض النووي يُسمّى پام (Protospacer Adjacent Motif - PAM) الذي يقع مباشرة بجوار التسلسل المستهدف (Protospacer) في الحمض النووي للكيان الغازي (مثل الڤيروس). يُعدّ تسلسل پام ضروريًا لتمكين إنزيمات كاس (مثل كاس9) من التعرف إلى الحمض النووي الغازي والارتباط به، ويُستثنى هذا التسلسل من الجزء الذي يُخزّن في مصفوفة كريسبر البكتيرية. إن وجود طفرات في تسلسل پام الخاص بالحمض النووي الغازي قد يمنع إنزيم كاس من قطع هذا الحمض النووي، ومن ثمّ، يفشل النظام المناعي في إسكات الجينات الدخيلة[27]. وإضافة إلى وظيفته في تمكين التعرف إلى الحمض النووي الغازي والارتباط به، يُعدّ تسلسل پام ضروريًا للتمييز بين الحمض النووي الذاتي للخلية البكتيرية والحمض النووي غير الذاتي (الغازي)، إذ إن غياب تسلسل پام في قطع الحمض النووي الخاصة بالبكتيريا يمنع إنزيم كاس من استهدافها وقطعها. ويجب ملاحظة أن تسلسل پام خاص بنوع إنزيم كاس؛ فمثلًا، إنزيم كاس9 (المستخدم على نطاق واسع في تحرير الجينات) يتعرف غالبًا إلى التسلسل القصير NGG في الحمض النووي الغازي، في حين أن إنزيمات كاس الأخرى تتعرف إلى تسلسلات پام مختلفة، ما يوسع نطاق الجينات التي يمكن استهدافها وتحريرها[28].
الحمض النووي الريبي المنشّط لكريسبر تبادليًا
كانت العالمة الفرنسية إيمانويل شارپنتييه (Emmanuelle Charpentier) من الروّاد في مجال أبحاث كريسبر، وكان لها إسهام بالغ في توضيح آلية نظام كريسبر كاس9. وجاء إنجازها الرئيس من دراستها لبكتيريا العقدية المقيحة (Streptococcus pyogenes)، إذ اكتشفت مكونًا جديدًا أساسيًا وهو الحمض النووي الريبي المنشط لكريسبر تبادليًا {{الحمض النووي الريبي المنشط لكريسبر تبادليًا: (trans-activating CRISPR RNA - tracrRNA) جزيء رنا غير مُشفِّر ضروري لوظيفة أنظمة كريسبر كاس من النوع الثاني وبعض أنظمة كريسبر كاس من النوع الخامس. يقترن هذا الجزيء مع كريسبر رنا (crRNA)، مُشكِّلًا ثنائيًا يُعالجه إنزيم ريبونيوكلياز 3. ثم يتعرف بروتين كاس9 إلى ثنائي crRNA:tracrRNA الناضج لاستهداف المادة الوراثية الغريبة وتكسيرها.}}. وأوضحت أن معالجة الحمض النووي الريبي الموجه في هذه البكتيريا لا يعتمد إنزيم كاس6، بخلاف أنظمة كريسبر الأخرى، بل يتطلب وجود الحمض النووي الريبي المنشط لكريسبر واستخدام إنزيم ريبونيوكلياز 3 الخاص بالمضيف. وقد أدت هذه الآلية إلى تنشيط بروتين كاس9، الذي حددته بأنه الإنزيم الذي يُسكت الجينات الغريبة بإحداث قطع دقيقة مزدوجة السلسلة في الحمض النووي. وكانت أبحاثها وقتئذٍ تركّز على بروتين كاس9 في نظام كريسبر الثاني[29].
كريسبر أداة تعديل جينية
[الشكل1]
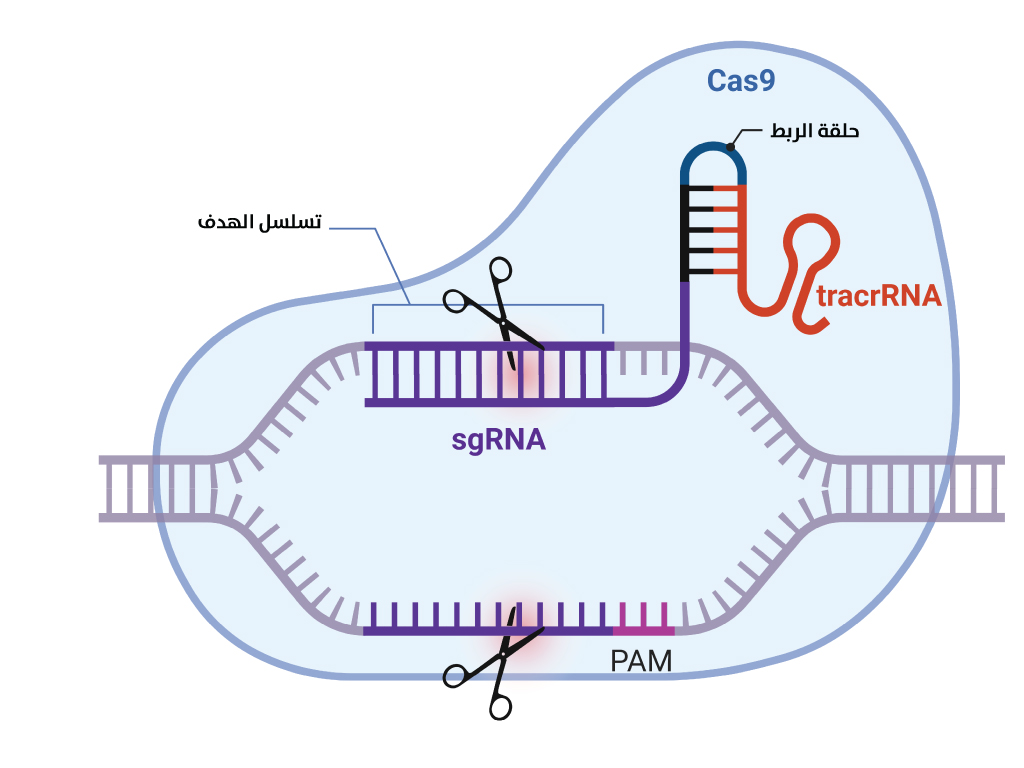 يوضح البنية الجزيئية المعقدة لبروتين Cas9 مرتبطاً بـ sgRNA للتعرف على تسلسل الـ PAM وقص الحمض النووي المستهدف بدقة عالية.
حذف الصورة؟
سيؤدي هذا إلى نقل الصورة إلى سلة المهملات.
[الشكل2]
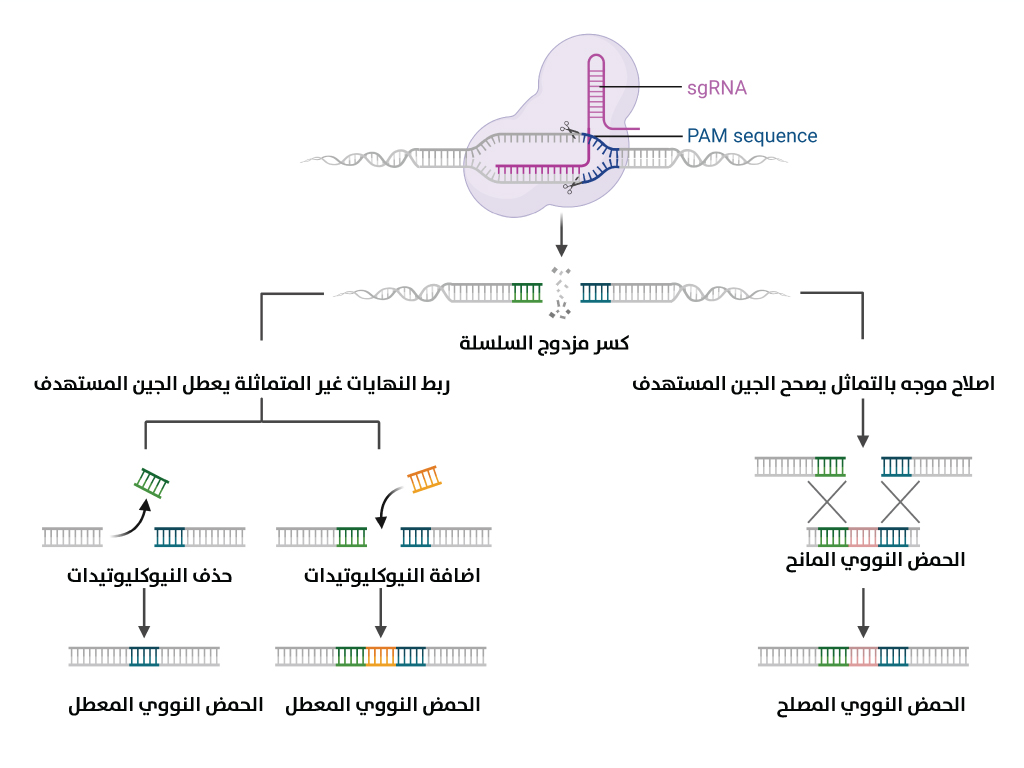 يقارن بين مساري الإصلاح الخلوي للـ DNA (NHEJ المعطل للجين و HDR الموجه بالتماثل) لاستبدال أو تصحيح التسلسلات المستهدفة.
حذف الصورة؟
سيؤدي هذا إلى نقل الصورة إلى سلة المهملات.
التقت داودنا بإيمانويل شارپنتييه في عام 2011 في الاجتماع السنوي في الجمعية الأميركية للأحياء الدقيقة (American Society for Microbiology) في بورتوريكو[30]. ومع وجود ضرورة لفهم آلية عمل بروتين كاس9 فهمًا تفصيليًا، تعاون مختبر شارپنتييه وداودنا معًا للإجابة عن الأسئلة المتبقية لتقديم فهم شامل بشأن نظام كريسبر، ما كان يتطلب معرفة عميقة في علوم الكائنات الدقيقة، وتقنيات متطورة في تنقية البروتينات وتقنيات حيود الأشعة السينية (X-ray diffraction) لتحديد الهياكل الجزيئية.و حالما فُهمت طبيعة عمل بروتين كاس9 وحاجته إلى دليل مزدوج مكوّن من جزيئين أساسيين من الأحماض النووية الريبية (crRNA وtracrRNA)، بدأت الأفكار تتبلور بشأن إمكانية تسهيل التلاعب بنظام كريسبر عن طريق ربط هذين الجزيئين في جزيء واحد مُدمج (hybrid RNA molecule)، ما بات يُعرف بدليل الحمض النووي الأحادي (single guide RNA - sgRNA)، ومن ثم هندسة أداة تعديل جينيّة قابلة للبرمجة مبنية على أساس نظام المناعة التكيفي (Adaptive immune system) لدى البكتيريا، لاستعماله في إطار مختلف تمامًا عن الدفاع البكتيري، ما فتح الباب لإمكانية تعديل الجينات بدقة في كائنات حية من تصنيفات مختلفة[31].
وقد وضح العلماء في مختبري داودنا وشارپنتييه بأنه يمكن تعديل دليل الحمض النووي الريبي أُحادي السلسلة بحسب مناطق مختلفة من الجينوم وفق ما تستدعيه الحاجة والحالة. وكذلك فإنهم استبدلوا إنزيم ريبونيوكلياز 3 في البكتيريا بإنزيمات الخلية المستهدفة المشابهة له (الشكل 1)، ونُشرت النتائج في ورقة علمية عام 2012[32].
عمومًا، تعتمد تقنيات تعديل الجينوم الآليات الموجودة طبيعيًا في الخلايا، ويَقطع نظام كريسبر الحمض النووي منزوع الأكسجين في منطقة محددّة تكون فيها على سبيل المثال طفرة جينيّة مرتبطة بمرضٍ معيّن، ما يحفّز عملية إصلاح الحمض النووي الطبيعية. ويُدخل تسلسل جيني "صحيح" لتستخدمه الخليّة في إصلاح الكسر، ما يتيح إمكانية إصلاح العيوب الجينية عن طريق استبدال نيوكليوتيدات جديدة أو إدراجها (الشكل 2).
نظام كريسبر في البكتيريا
[الشكل3]
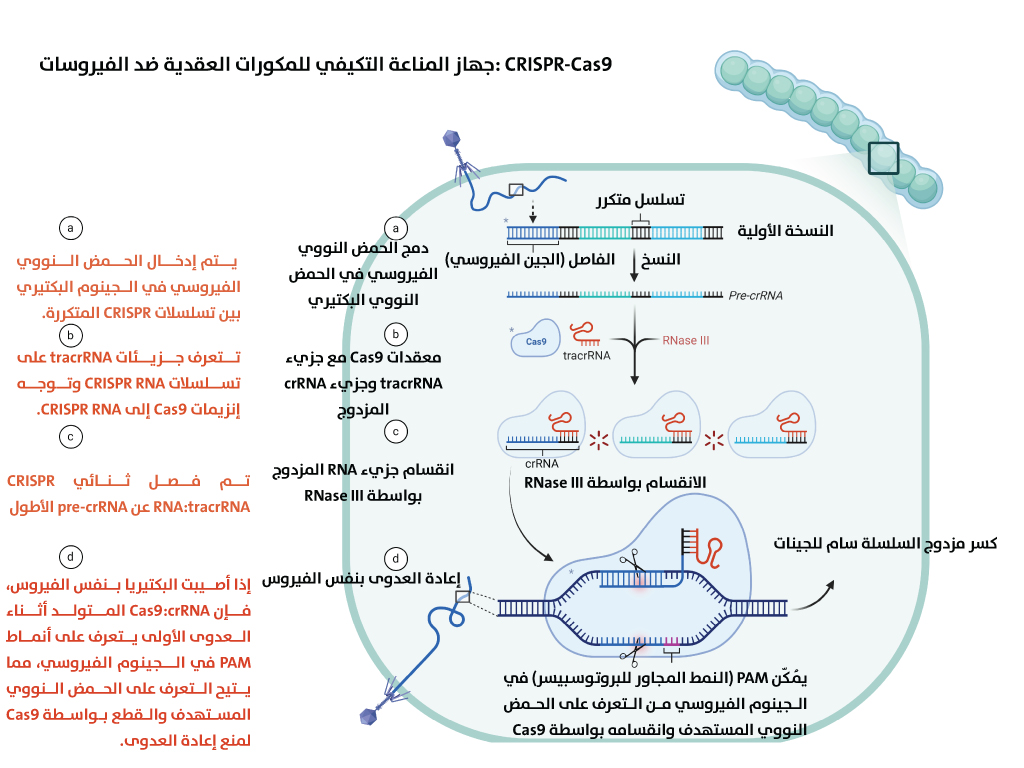 يلخص النظام المناعي الطبيعي للبكتيريا ضد الفيروسات عبر دمج تسلسلات الفيروس وتوجيه Cas9 لتدمير الحمض النووي الغازي.
حذف الصورة؟
سيؤدي هذا إلى نقل الصورة إلى سلة المهملات.
تمتلك الكائنات بدائية النوى نظامًا مناعيًا تكيّفيًا يسمح لها بتخزين المعلومات الجينية الدخيلة من الڤيروسات المهاجمة للبكتيريا (العاثيّات)، وحماية نفسها منها. ورصدت أنواع عدّة لأنظمة كريسبر، تتشارك في أساسيات عملها في إسكات الجينات وقطعها، وتختلف في جوانب ثانوية من حيث أنواع البروتينات المشاركة، وآليات القطع، ونوع الحمض النووي.
ونظام كريسبر الثاني هو النظام الذي استعملته داودنا وشاربنتييه لتطوير تقنية التعديل الجيني. تُشير كلمة كريسبر إلى جزء/ منطقة في الحمض النووي منزوع الأكسجين، التي تُخزَّن فيها قطع الحمض النووي الدخيلة بوصفها فواصل إضافية في الجينوم البكتيري، يُشار إلى تلك العملية بامتلاك الفواصل (spacer acquisition) وهي المرحلة الأولى. في حالات الإصابة المستقبلية بالڤيروس نفسه، تُنسخ تلك القطع إلى حمض نووي ريبي تمهيدي يُقطّع لاحقًا إلى سلاسل حمض نووي ريبي قصيرة (كريسبر رنا) تكون مكملة لتسلسلات الحمض النووي الڤيروسية، وهي المرحلة الثانية (تخليق كريسبر رنا). تعدّ هذه المرحلة دليلًا لتوجيه نظام كريسبر إلى التسلسل الدخيل في الحمض النووي منزوع الأكسجين الأصلي مزدوج الشريط، ليقطع بروتين كاس9 الحمض النووي. إن نظام كريسبر ذو دقّة شديدة، فإضافة إلى كون كريسبر رنا (الدليل) مكمّلًا للتسلسل الڤيروسي، يستوجب التعرّف إلى التسلسل الڤيروسي پام ليتمكن بروتين كاس9 من قطع الحمض النووي في مناطق معيّنة، وبذلك تكون الخلية البكتيرية قد منعت الڤيروس من ترجمة بروتيناته، وحمت نفسها في الوقت نفسه من المناعة الذاتيّة (الشكل 3).
آفاق كريسبر
يعدّ تطوير نظام كريسبر ثوريًا لأسباب عدة، خصوصًا في إطار التطور السريع والمستمر في معرفة الجينوم لكائنات عدة. فمنذ عام 2012، توسّع نطاق أنظمة كريسبر لتضم باقي أنواع الأنظمة علاوة على النظام الثاني الذي استعمله مختبرا داودنا وشارپنتييه. فالأنظمة الأخرى تختلف في متطلباتها لتسلسلات پام. وقد أظهرت دراسة وجود نظام كريسبر يعمل على الحمض النووي الريبي المرسال.
أسست داودنا عام 2015 مؤسسة الجينوم المبتكر (Innovative Genome Institute - IGI) لتوسيع أبحاث كريسبر لتطوير الصحة، والزراعة، ودراسات المناخ، وتضم هذه المؤسسة عددًا من الباحثين من جامعات مختلفة. كانت وقتئذٍ قد أطلقت أول شركة لها "علوم كاريبو" لنقل تقنية كريسبر من المختبر إلى العيادة، وكان هدفها حينئذٍ تطوير علاج لمرض فقر الدم المنجلي (Sickle cell anemia).
وخلال فترة انتشار ڤيروس كورونا (سارس كوف-2، SARS-CoV-2) المتسبب بجائحة كوڤيد-19، بدأت داودنا رفقة علماء عديدين تطوير تقنية دقيقة ومتاحة للكشف عن الڤيروس باستخدام بروتين كاس13أ، وهي تقنية أثبتت نجاعتها سابقًا في الكشف عن ڤيروس الورم الحليمي البشري (Human papilloma virus - HPV) باستخدام بروتين كاس12[33] .
التبعات الأخلاقية
يطرح مفهوم التعديل الجيني تساؤلات أخلاقية عدة، إذ من الممكن تعديل الجينات في نوعي الخلايا الجسمية والجنسية، ما يترتب عليه تعديلات تمتد للأجيال المقبلة، علاوة على إمكانية استغلال التقنية لتحقيق مآرب شخصية أو تجاريّة بعيدة عن الهدف الأساسي، وهو المساعدة في صحة الأفراد والجنس البشري. ولهذا، كونت منظمة الصحة العالمية لجنة عالمية من المختصّين لمراقبة تقنيات التعديل الجينية والتحكم بها. وكانت داودنا من منظمي المؤتمر العالمي في تعديل الجينوم البشري الذي نوقشت فيه الضوابط القانونية والأخلاقية التي يجب اتّباعها قبل اتخاذ قرارات في مسألة التعديل الجيني[34]. وبالرغم من ذلك، ظهر أول أطفال معدلين جينيًا بتقنية كريسبر في الصين عام 2018، على نحوٍ غير قانوني ومن دون مبرّرات طبيّة. وأكدّت داودنا أن خطورة تعديل جينات النسل البشري ما تزال عظيمة، ما يوجب منع التعديل الجيني لـالخلايا الجنسية.
جائزة نوبل
فوجئت جينيفر داودنا بخبر فوزها بجائزة نوبل في الكيمياء، بل قالت إنها ظنت أن المكالمة كانت لطلب تعليقها على فوز عالم آخر بالجائزة. بدأ بحث كريسبر بفضول، بالرغم من يقينها أنها كانت تعمل على شيء بالغ الأهمية. وعند تلقّيها مكالمة فوزها بجائزة نوبل قالت في مقابلة معها إنها تأمل أن يكون هذا الإنجاز الذي حقّقته امرأتان مصدر إلهام للفتيات حول العالم اللواتي قد يشعرن في بعض الأحيان أن عملهن، مهما كان مهمًا، لا يُقدر بالدرجة نفسها كما لو كنّ رجالًا[35].
المراجع
Cate, Jamie H. et al. “Crystal Structure of a Group I Ribozyme Domain: Principles of RNA Packing.” Science. vol. 273, no. 5282 (1996). pp. 1678-1685.
Chen, Janice S. et al. “CRISPR-Cas12a Target Binding Unleashes Indiscriminate Single-Stranded DNase Activity.” Science. vol. 360, no. 6387 (2018). pp. 436-439.
Deltcheva, Elitza et al. “CRISPR RNA Maturation by Trans-Encoded Small RNA and Host Factor RNase III.” Nature. vol. 471, no. 7340 (2011). pp. 602-607.
Doudna, J. A. & J. W. Szostak. “RNA-catalysed synthesis of complementary-strand RNA.” Nature. vol. 339, no. 6225, (1989). pp. 519-522.
Doudna, Jennifer A. “Jennifer A. Doudna – Biographical.” The NobelPrize. at: https://acr.ps/hBxU4wE
________. “Science is a Wonderful Career.” The Kavli Prize. at: https://acr.ps/hBxU3Sx
Doudna, Jennifer. “Jennifer Doudna.” Gruber Foundation - Yale University. at: https://acr.ps/hBxU43o
Garneau, Josiane E. et al. “The CRISPR/Cas Bacterial Immune System Cleaves Bacteriophage and Plasmid DNA.” Nature. vol. 468, no. 7320 (2010). pp. 67-71.
Gostimskaya, Irina. “CRISPR–Cas9: A History of Its Discovery and Ethical Considerations of Its Use in Genome Editing.” Biochemistry (Moscow). vol. 87, no. 8 (2022). pp. 777-788.
Gregorowius, Daniel, Nikola Biller‐Andorno & Anna Deplazes‐Zemp. “The Role of Scientific Self‐regulation for the Control of Genome Editing in the Human Germline.” EMBO Reports. vol. 18, no. 3, article no. 5 (2017).
Guttinger, Stephan. “Trust in Science: CRISPR–Cas9 and the Ban on Human Germline Editing.” Science and Engineering Ethics. vol. 24, no. 4 (2018). pp. 1077-1096.
“Human Genome Project.” National Human Genome Research Institute. at: https://acr.ps/hBxU4iu
“Jennifer A. Daoudna - Interview.” The Nobel Prize. at: https://acr.ps/hBxU4AT
“Jennifer A. Doudna, Ph.D. '89, Shares Chemistry Nobel Prize.” Harvard Magazine. 7\10\2020. at: https://acr.ps/hBxU4P3
“Jennifer A. Doudna, Ph.D.” Academy of Achievement. 13\6\2023. at: https://acr.ps/hBxU4aW
“Jennifer Doudna.” Encyclopaedia Britannica. 18\9\2026. at: https://acr.ps/hBxU405
“Jill Banfield: How a Curious Google Search Led Me to Jennifer Doudna.” Berkeley News. 7\10\2020. at: https://acr.ps/hBxU4lN
Jinek, Martin et al. “A Programmable Dual-RNA-Guided DNA Endonuclease in Adaptive Bacterial Immunity.” Science. vol. 337, no. 6096 (2012). pp. 816-821.
Krämer, Katrina. “How CRISPR Went from Niche to Nobel.” Chemistry World. 15\10\2020. at: https://acr.ps/hBxU4ef
Marino, Melissa. “Biography of Jennifer A. Doudna.” PNAS. vol. 101, no. 49 (2004). pp. 16987-16989.
Marraffini, Luciano A. & Erik J. Sontheimer. “CRISPR Interference Limits Horizontal Gene Transfer in Staphylococci by Targeting DNA.” Science. vol. 322, no. 5909 (2008). pp. 1843-1845.
Marraffini, Luciano A. & Erik J. Sontheimer. “Self Versus Non-Self Discrimination During CRISPR RNA-Directed Immunity.” Nature. vol. 463, no. 7280 (2010). pp. 568-571.
Mojica, F. J. M., G. Juez & F. Rodriguez-Valera. “Transcription at Different Salinities of Haloferax Mediterranei Sequences Adjacent to Partially Modified PstI Sites.” Molecular Microbiology. vol. 9, no. 3 (1993). pp. 613-621.
Mojica, Francisco J. M. et al. “Intervening Sequences of Regularly Spaced Prokaryotic Repeats Derive from Foreign Genetic Elements.” Journal of Molecular Evolution. vol. 60, no. 2 (2005). pp. 174-182.
“Nobel Prize winner Jennifer Doudna: How a curious girl from Hawaii became a science superstar.” Sally Ride Science. 7\10\2020. at: https://acr.ps/hBxU4tl
Sternberg Samuel H., Rachel E. Haurwitz & Jennifer A. Doudna. “Mechanism of Substrate Selection by a Highly Specific CRISPR Endoribonuclease.” RNA. vol. 18, no. 4 (2012). pp. 661-672.
“Thomas R. Cech – Facts.” The Nobel Prize. at: https://acr.ps/hBxU4Ec
[1] Jennifer A. Doudna, “Jennifer A. Doudna – Biographical,” The NobelPrize, accessed on 14\10\2025, at: https://acr.ps/hBxU4wE
[2] “Jennifer A. Doudna, Ph.D.,” Academy of Achievement, 13\6\2023, accessed on 14\10\2025, at: https://acr.ps/hBxU4aW
[3] “Nobel Prize winner Jennifer Doudna: How a curious girl from Hawaii became a science superstar,” Sally Ride Science, 7\10\2020, accessed on 14\10\2025, at: https://acr.ps/hBxU4tl
[4] Doudna, “Jennifer A. Doudna – Biographical”.
[5] Ibid.
[6] “Jennifer Doudna,” Encyclopaedia Britannica, 18\9\2026, accessed on 28\9\2026, at: https://acr.ps/hBxU405
[7] “Jennifer A. Doudna, Ph.D. '89, Shares Chemistry Nobel Prize,” Harvard Magazine, 7\10\2020, accessed on 28\9\2026, at: https://acr.ps/hBxU4P3
[8] Jennifer A. Doudna, “Science is a Wonderful Career,” The Kavli Prize, accessed on 14\10\2025, at: https://acr.ps/hBxU3Sx
[9] Doudna, “Jennifer A. Doudna – Biographical”.
[10] J. A. Doudna & J. W. Szostak, “RNA-catalysed synthesis of complementary-strand RNA,” Nature, vol. 339, no. 6225, (1989), pp. 519-522.
[11] Melissa Marino, “Biography of Jennifer A. Doudna,” PNAS, vol. 101, no. 49 (2004), pp. 16987-16989.
[12] “Human Genome Project,” National Human Genome Research Institute, accessed on 28\9\2026, at: https://acr.ps/hBxU4iu
[13] Jennifer Doudna, “Jennifer Doudna,” Gruber Foundation - Yale University, accessed 14\10\2025, at: https://acr.ps/hBxU43o
[14] “Thomas R. Cech – Facts,” The Nobel Prize, accessed on 14\10\2025, at: https://acr.ps/hBxU4Ec
[15] Marino, “Biography of Jennifer A. Doudna”.
[16] Doudna, “Jennifer A. Doudna – Biographical”.
[17] Ibid.
[18] Jamie H. Cate et al., “Crystal Structure of a Group I Ribozyme Domain: Principles of RNA Packing,” Science, vol. 273, no. 5282 (1996), pp. 1678-1685.
[19] Francisco Juan Martínez Mojica, G. Juez & F. Rodriguez-Valera, “Transcription at Different Salinities of Haloferax Mediterranei Sequences Adjacent to Partially Modified PstI Sites,” Molecular Microbiology, vol. 9, no. 3 (1993), pp. 613-621.
[20] Katrina Krämer, “How CRISPR Went from Niche to Nobel,” Chemistry World, 15\10\2020, accessed on 20\10\2025, at: https://acr.ps/hBxU4ef
[21] Francisco J. M. Mojica et al., “Intervening Sequences of Regularly Spaced Prokaryotic Repeats Derive from Foreign Genetic Elements,” Journal of Molecular Evolution, vol. 60, no. 2 (2005), pp. 174-182.
[22] Krämer, op. cit.
[23] “Jill Banfield: How a Curious Google Search Led Me to Jennifer Doudna,” Berkeley News, 7\10\2020, accessed on 19\10\2025, at: https://acr.ps/hBxU4lN
[24] Irina Gostimskaya, “CRISPR–Cas9: A History of Its Discovery and Ethical Considerations of Its Use in Genome Editing,” Biochemistry (Moscow), vol. 87, no. 8 (2022), pp. 777-788.
[25] Luciano A. Marraffini & Erik J. Sontheimer, “CRISPR Interference Limits Horizontal Gene Transfer in Staphylococci by Targeting DNA,” Science, vol. 322, no. 5909 (2008), pp. 1843-1845.
[26] Samuel H. Sternberg, Rachel E. Haurwitz & Jennifer A. Doudna, “Mechanism of Substrate Selection by a Highly Specific CRISPR Endoribonuclease,” RNA, vol. 18, no. 4 (2012), pp. 661-672.
[27] Josiane E. Garneau et al., “The CRISPR/Cas Bacterial Immune System Cleaves Bacteriophage and Plasmid DNA,” Nature, vol. 468, no. 7320 (2010), pp. 67-71.
[28] Luciano A. Marraffini & Erik J. Sontheimer, “Self Versus Non-Self Discrimination During CRISPR RNA-Directed Immunity,” Nature, vol. 463, no. 7280 (2010), pp. 568-571.
[29] Elitza Deltcheva et al., “CRISPR RNA Maturation by Trans-Encoded Small RNA and Host Factor RNase III,” Nature, vol. 471, no. 7340 (2011), pp. 602-607.
[30] Doudna, “Jennifer A. Doudna – Biographical”.
[31] Ibid.
[32] Martin Jinek et al., “A Programmable Dual-RNA-Guided DNA Endonuclease in Adaptive Bacterial Immunity,” Science, vol. 337, no. 6096 (2012), pp. 816-821.
[33] Janice S. Chen et al., “CRISPR-Cas12a Target Binding Unleashes Indiscriminate Single-Stranded DNase Activity,” Science, vol. 360, no. 6387 (2018), pp. 436-439.
[34] Stephan Guttinger, “Trust in Science: CRISPR–Cas9 and the Ban on Human Germline Editing,” Science and Engineering Ethics, vol. 24, no. 4 (2018), pp. 1077-1096; Daniel Gregorowius, Nikola Biller‐Andorno & Anna Deplazes‐Zemp, “The Role of Scientific Self‐regulation for the Control of Genome Editing in the Human Germline,” EMBO Reports, vol. 18, no. 3, article no. 5 (2017).
[35] “Jennifer A. Daoudna - Interview,” The Nobel Prize, accessed on 19/10/2026, at: https://acr.ps/hBxU4AT
