الموجز
الأستلة (Acetylation) تعديلٌ كيميائيٌّ حيويٌّ تُنقل فيه مجموعة
الأسيتيل (CH₃CO–) من مانحٍّ ك الأسيتيل-مرافق الإنزيم أ(Acetyl-CoA) {{الأسيتيل-مرافق الإنزيم أ: جزيء حيوي مركزي في عملية الاستقلاب الخلوي، يعمل ناقلًا لمجموعة الأسيتيل في التفاعلات الكيميائية الحيوية، ويُعد حلقة وصل أساسية بين مسار تحلل السكر ودورة حمض الستريك.}} إلى جزيءٍ مستقبِل، غالبًا بقايا
الليسين (Lysine) في البروتينات، فتتبدّل خصائصه البنيوية والوظيفية والتنظيمية.
تُعدّ الأستلة من أبرز التعديلات ما بعد الترجمة (post-translational modifications)، وتشمل: الأستلة الطرفية الأمينية وأستلة الليسين الداخلية، ولا تقتصر على
الهستونات (Histones) بل تشمل آلاف البروتينات غير الهستونية. في تنظيم التعبير الجيني، تُعدّ أستلة الهستونات مثالًا بارزًا؛ إذ تُضعف ارتباط الهستونات بالحمض النووي، فينفتح
الكروماتين(Chromatin) {{الكروماتين: مركب معقد من الحمض النووي (DNA) والبروتينات في نواة الخلية، وظيفته تكثيف الحمض النووي ليناسب حجم النواة وحمايته من التلف وتسهيل الوصول إليه في أثناء نسخ الجينات.}} وتسهل عملية النسخ. تُحفَّز هذه التفاعلات بإنزيمات متخصصة: ناقلات أسيتيل الليسين (الكاتبين، writers) ونازعات الأستلة (الفرّاشين، erasers)، التي تنقسم إلى فئات معتمدة على الزنك وأخرى معتمدة على +NAD كالسيرتوينات (Sirtuins) المرتبطة بالشيخوخة والاستقلاب.
ترتبط الأستلة بالاستقلاب الخلوي عبر الأسيتيل-مرافق الإنزيم أ، وتسهم في استقلاب الأدوية والمواد الغريبة عن الجسم عبر إنزيمات N-acetyltransferases ذات الفروق الفردية الدوائية. كذلك تشارك في عددٍ من الأمراض، كالسرطان والالتهابات والاضطرابات العصبية والاستقلابية، وهو ما جعل إنزيماتها أهدافًا دوائية مهمة، شملت مثبطات نازعات أستلة الهستونات المعتمدة سريريًا كالڤورينوستات والروميليديسبين. وتُدرس الأستلة اليوم بمجموعةٍ من الطرائق الحديثة، أبرزها مطيافية الكتلة (Mass spectroscopy, MS)، والترسيب المناعي للكروماتين (chromatin immunoprecipitation, ChIP)، والتقنيات البنيوية كالرنين المغناطيسي النووي (Nuclear magnetic resonance, NMR) والمجهر الإلكتروني فائق البرودة (cryogenic electron microscopy, Cryo-EM).
تعريفها
الأستلة (Acetylation) هي عملية كيميائية تُنقل فيها مجموعة الأسيتيل (acetyl) إلى مركب آخر. ومجموعة الأسيتيل هي مجموعة كيميائية مشتقة من
حمض الخل (Acetic acid)، وصيغتها العامة CH₃CO–[1]. وقد ترتبط هذه المجموعة بذرة نيتروجين، أو أكسجين، أو كبريت، أو كربون بحسب طبيعة الجزيء المستقبل وظروف التفاعل. وتُعد الأستلة في السياق الحيوي من التعديلات الجزيئية المهمة التي قد تحدث في البروتينات، أو السكريات، أو الجزيئات الصغيرة، أو المركبات الدوائية.
لا تقتصر الأستلة على كونها تفاعلًا كيميائيًا يسيرًا، بل تمثل في الخلية آلية تنظيمية دقيقة تؤثر في البنية والوظيفة والتفاعل الجزيئي. فعند إضافة مجموعة الأسيتيل إلى بروتين معين، قد يتغير شكله الفراغي، أو شحنته الكهربائية، أو قدرته على الارتباط بجزيئات أخرى. ولهذا تُعد الأستلة من
التعديلات ما بعد الترجمية (post-translational modifications) المهمة، أي من التعديلات التي تطرأ على
البروتين بعد تصنيعه من
الريبوسوم.[2]
أساسها الكيميائي
من الناحية الكيميائية، تُعد الأستلة نوعًا من أنواع
الأسيلة، أي إضافة مجموعة أسيلية إلى جزيء آخر. وتُضاف مجموعة الأسيتيل عادة إلى مواضع تحتوي على ذرات قادرة على تكوين رابطة جديدة، مثل: ذرات النيتروجين في
المجموعات الأمينية، أو ذرات الأكسجين في المجموعات
الهيدروكسيلية. وتنتج عن ذلك مركبات أستيلية مختلفة، مثل: الأميدات أو الإسترات، تبعًا لنوع الرابطة المتكونة.
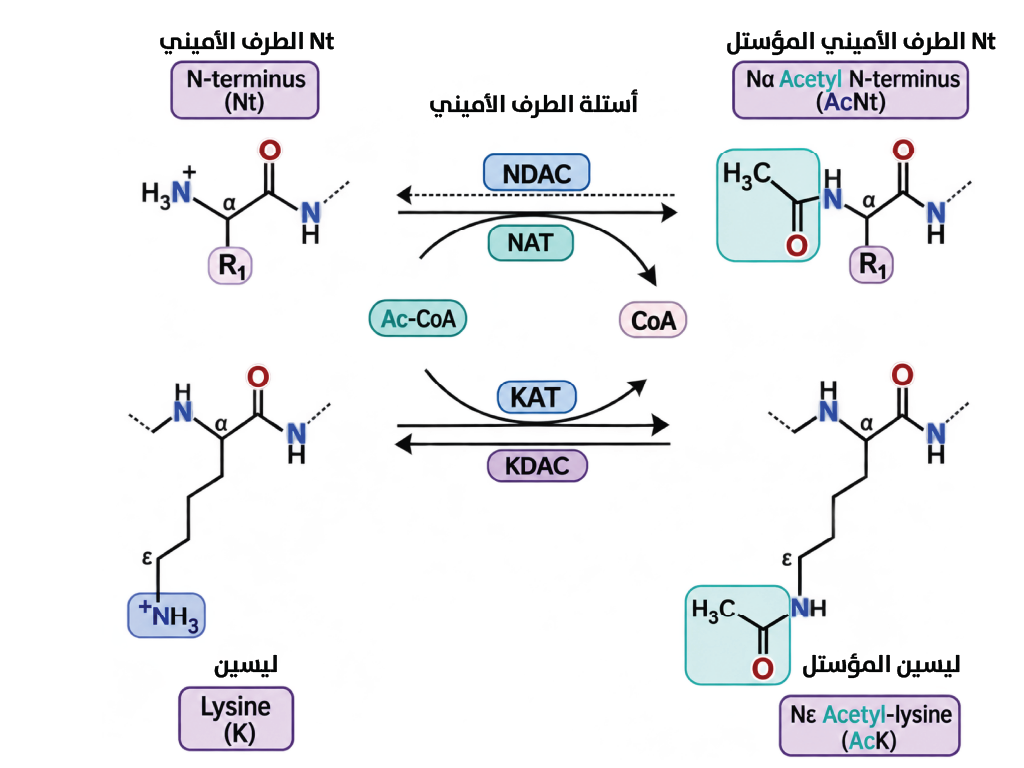 مقارنة بين مسارات أسيتلة الطرف الأميني والأحماض الأمينية (مثل الليسين) بتدخل إنزيمات النقل ونزع الأسيتيل.
حذف الصورة؟
سيؤدي هذا إلى نقل الصورة إلى سلة المهملات.
يمكن تحقيق الأستلة في الكيمياء العضوية المخبرية، باستخدام كواشف كيميائية، مثل: بلا ماء حمض الخل (Acetic anhydride) أو كلوريد الأسيتيل. أما في الأنظمة الحيوية، فتحدث الأستلة عادة بوساطة
إنزيمات متخصصة، ويُعد
الأسيتيل-مرافق الإنزيم أ من أهم مانحي مجموعة الأسيتيل داخل الخلية[3]. ويكتسب هذا المركب أهمية مركزية، لأنه يربط بين الاستقلاب الخلوي وتنظيم البروتينات والتعبير الجيني.
ويؤدي إدخال مجموعة الأسيتيل إلى تغيير خواص الجزيء المستقبل، فقد تقل قطبيته، أو تتغير شحنته، أو تتعدل قابليته للذوبان، أو تختلف قدرته على التفاعل مع جزيئات أخرى. وفي البروتينات، تظهر هذه الآثار بوضوح عند أستلة بقايا ليسين، لأن مجموعة ليسين الجانبية تكون موجبة الشحنة غالبًا عند
الرقم الهيدروجيني الفيزيولوجي. وعند أستلتها، تُعادَل هذه الشحنة، وهو ما يؤثر في تآثرات البروتين مع الحمض النووي أو البروتينات الأخرى أو الأغشية الخلوية.
إنزيمات الأستلة/نزع الأستلة
تعتمد الأستلة الحيوية على إنزيمات ناقلة لمجموعة الأسيتيل، وتُستخدم هذه الإنزيمات غالبًا الأسيتيل-مرافق الإنزيم أ مصدرًا لمجموعة الأسيتيل، ثم تنقلها إلى الجزيء الهدف. وتُعرف الإنزيمات التي تضيف مجموعة الأسيتيل إلى بقايا الليسين باسم ناقلات أسيتيل ليسين، وتشمل عائلات متعددة تختلف في بنيتها واختصاصها ومواقع عملها داخل الخلية (الجدول 1).
في المقابل، توجد إنزيمات مسؤولة عن إزالة مجموعة الأسيتيل، تُسمى نازعات الأستلة (Histone Deacetylases: HDACs)، وتُصنَّف تقليديًا إلى أربع فئات رئيسة. تشمل الفئات الأولى (I) والثانية (II) والرابعة (IV) نازعات أستلة تعتمد في آليتها التحفيزية على أيون الزنك (Zn²⁺)، أما الفئة الثالثة (III) فتتميّز عن سائر الفئات بأنها تعتمد على مركب
نيكوتين أميد الأدينين ثنائي النوكليوتيد (NAD+) هو جزيء يرتبط بحالة الطاقة والاستقلاب داخل الخلية، وتُعرف هذه الفئة باسم عائلة السيرتوينات (Sirtuins)، تيمنًا ببروتينSir2 (Silent Information Regulator 2) المُكتشف أولًا في خميرة الخبز. وللسيرتوينات أهمية بالغة في الربط المباشر بين حالة الطاقة الخلوية والتنظيم الجيني، إذ يتطلّب نشاطها تكسير جزيء +NAD إلى نيكوتيناميد وأُو-أسيتيل-أدينينوسين ثنائي الفوسفات-الرايبوز، وهو ما يجعلها مستشعرًا خلويًا لنسبة +NAD/+NADH ومن ثمّ للحالة الأيضية للخلية. تتوزع السيرتيونات في مواقع خلوية متعددة في النواة والميتوكوندريا والسيتوبلاسم. كما أظهرت الدراسات أن زيادة نشاط بعض السيرتوينات يطيل العمر، ولعلّ ذلك يفسّر الاهتمام البالغ بها بوصفها أهدافًا دوائية[4].
ويُعد التوازن بين الأستلة ونزع الأستلة ضروريًا للخلية، فإذا زادت الأستلة أو نقصت على نحو غير طبيعي، فقد تختل أنماط التعبير الجيني أو نشاط البروتينات أو الاستجابات الخلوية. ولهذا ترتبط اضطرابات هذا التوازن بعدد من الأمراض، كذلك أصبحت إنزيمات الأستلة ونزعها أهدافًا دوائية مهمة.
[الجدول 1]
أشكال الأستلة الحيوية المختلفة وأهميتها
|
الأثر الحيوي العام |
الموقع أو الهدف |
نوع الأستلة |
| تنظيم انفتاح الكروماتين والتعبير الجيني | بقايا ليسين في بروتينات الهستون |
أستلة الهستونات |
| تعديل النشاط، والثبات، والموقع، والتآثرات الجزيئية | إنزيمات، وعوامل نسخ، وبروتينات هيكلية |
أستلة البروتينات غير الهستونية |
| التأثير في ثبات البروتين وعمره النصفي | النهاية الأمينية للبروتين |
الأستلة الطرفية الأمينية |
| تسهيل الاستقلاب أو تغيير الفعالية والسمية | مركبات دوائية أو كيميائية داخل الجسم |
أستلة الأدوية والمواد الغريبة |
| تعديل مرتبط بالحالة الأيضية أو بالإجهاد الخلوي | بروتينات في بيئات غنية بالأسيتيل أو الأسيتيل-فوسفات |
الأستلة غير الإنزيمية |
الأستلة في البروتينات
تُعد أستلة البروتينات من أكثر صور الأستلة أهمية في الكيمياء الحيوية، وتحدث غالبًا في بقايا الحمض الأميني
ليسين، ولا سيما في المجموعة الأمينية الطرفية في السلسلة الجانبية له. ويؤدي هذا التعديل إلى إزالة الشحنة الموجبة من ليسين، وهو ما قد يغير تآثرات البروتين الكهروستاتيكية وبنيته ووظيفته.
وتوجد صورتان رئيسيتان لأستلة البروتينات[5]: الأولى هي
الأستلة الطرفية الأمينية، التي تحدث عند النهاية الأمينية للبروتين، وغالبًا ما تتم في أثناء الترجمة أو بعدها مباشرة. وتؤثر هذه العملية في ثبات البروتين، وموقعه داخل الخلية، وعمره النصفي، وقدرته على التفاعل مع بروتينات أخرى. أما الصورة الثانية فهي
أستلة ليسين الداخلية، التي تحدث في بقايا ليسين داخلية في البروتين، وتُعد من التعديلات التنظيمية القابلة للعكس.
ولا تقتصر الأستلة على الهستونات، بل تشمل آلاف البروتينات غير الهستونية، ومنها: عوامل النسخ، والإنزيمات، وبروتينات الهيكل الخلوي، وبروتينات إصلاح الحمض النووي، وبروتينات الميتوكوندريا[6]. ومن ثم فإن الأستلة تشارك في تنظيم مسارات حيوية متعددة، مثل: دورة الخلية، والاستجابة للإجهاد، والاستقلاب، وموت الخلية المبرمج، وإصلاح التلف الجيني.
أستلة الهستونات والتنظيم الجيني
تُعد أستلة الهستونات المثال الأشهر على الدور التنظيمي للأستلة، والهستونات بطبيعتها هي بروتينات قاعدية تشبه البكرة يرتبط بها الحمض النووي ويلتف عليها في نواة الخلية لتكوين
الكروماتين. ولأن الحمض النووي يحمل شحنة سالبة، فإن الشحنات الموجبة في بقايا ليسين في الهستونات تسهم في تثبيت ارتباطه بها، وعند أستلة هذه البقايا، تنخفض الشحنة الموجبة للهستونات، فيضعف ارتباطها بالحمض النووي نسبيًا، ويصبح الكروماتين أكثر انفتاحًا[7].
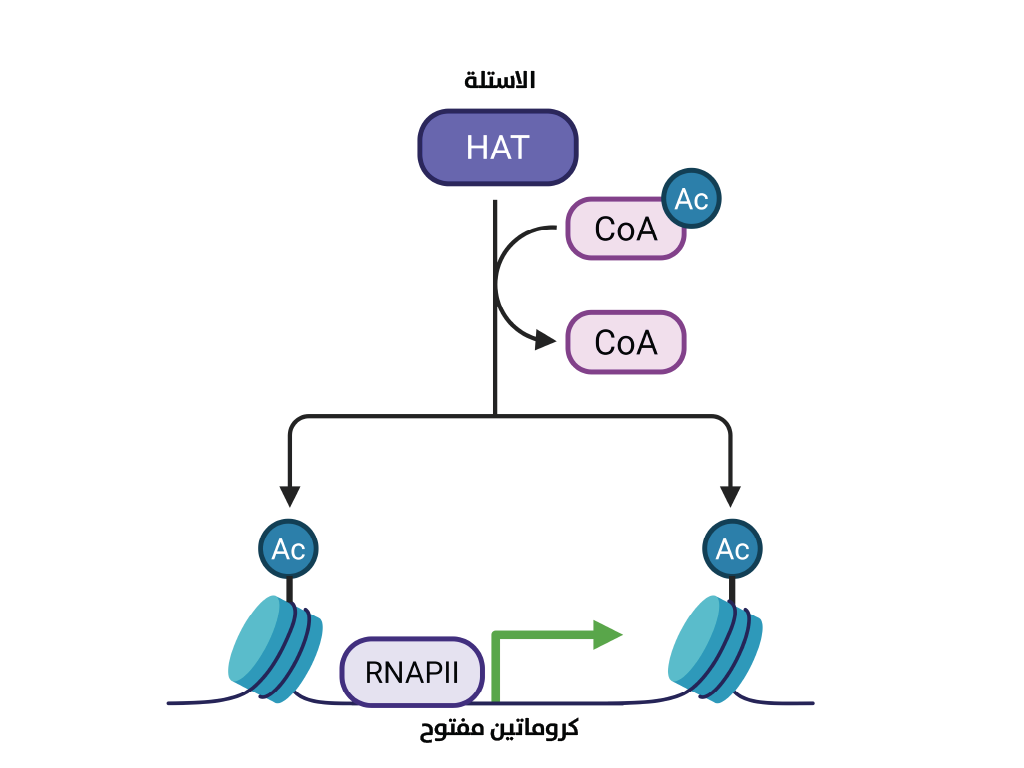 دور إنزيم أسيتيل الهيستون (HAT) في أستيل الهيستونات لفتح الكروماتين وتسهيل عملية النسخ الجيني.
حذف الصورة؟
سيؤدي هذا إلى نقل الصورة إلى سلة المهملات.
يسهّل هذا الانفتاح وصول
عوامل النسخ والإنزيمات المسؤولة عن قراءة
الجينات، ولذلك ترتبط أستلة الهستونات غالبًا بزيادة التعبير الجيني. وعلى العكس من ذلك، تؤدي إزالة الأستلة من الهستونات إلى تكثيف الكروماتين وتقليل إمكانية الوصول إلى الجينات، وهو ما يرتبط غالبًا بخفض التعبير الجيني.
وتتولى إنزيمات متخصصة إضافة مجموعة الأسيتيل إلى الهستونات، وتُعرف باسم
إنزيمات أستلة الهستونات أو
ناقلات أسيتيل ليسين {{أسيتيل ليسين: الشكل المؤستل من الحمض الأميني ليسين، يتكوّن بإضافة مجموعة الأسيتيل إلى المجموعة الأمينية الجانبية لليسين، فيُعادَل شحنته الموجبة.}}. أما إزالة مجموعة الأسيتيل فتتم بوساطة
إنزيمات نزع الأستلة. وهذا التوازن بين الإضافة والإزالة يمنح الخلية قدرة دقيقة على ضبط نشاط الجينات حسب نوع الخلية، ومرحلة النمو، والاستجابة للإشارات الداخلية والخارجية.[8]
الأستلة والاستقلاب الخلوي
ترتبط الأستلة ارتباطًا وثيقًا بالاستقلاب، لأن المانح الرئيس لمجموعة الأسيتيل في الخلية هو الأسيتيل-مرافق الإنزيم أ وله دور مهم في
حلقة كريبس التي توفر الطاقة للجسم وتولد جزيئات
أدينوزين ثلاثي الفوسفات ATP من الغلوكوز. وينشأ هذا المركب من مصادر متعددة، منها: تحلل الغلوكوز، وأكسدة الأحماض الدهنية، واستقلاب بعض الأحماض الأمينية. ولذلك فإن توفر الأسيتيل-مرافق الإنزيم أ يعكس جزئيًا الحالة الغذائية والطاقية للخلية.[9]
عندما يتغير مستوى الأسيتيل-مرافق الإنزيم أ، قد تتغير أنماط الأستلة داخل الخلية. وفي النواة، يمكن أن يؤثر ذلك في أستلة الهستونات وتنظيم التعبير الجيني. وفي الميتوكوندريا، قد تؤثر الأستلة في نشاط إنزيمات الاستقلاب، ولا سيما تلك المرتبطة بدورة حمض الستريك وأكسدة الأحماض الدهنية وسلسلة نقل الإلكترون.
وهكذا، لا تُعد الأستلة تعديلًا منفصلًا عن بقية العمليات الحيوية، بل هي جزء من منظومة مترابطة تربط التغذية والطاقة والاستقلاب بتنظيم البروتينات والجينات. وهذا الارتباط يفسر اهتمام الباحثين المتزايد بدراسة الأستلة في أمراض السمنة والسكري والشيخوخة والسرطان.
الأستلة واستقلاب الأدوية
للأستلة دور مهم في
استقلاب بعض الأدوية والمواد الغريبة عن الجسم، ففي
الكبد وأنسجة أخرى، تسهم إنزيمات N-acetyltransferases في إضافة مجموعة الأسيتيل إلى مركبات معينة، وهو ما قد يغير ذوبانها أو نشاطها أو قابليتها للإطراح[10]. وقد تكون الأستلة في بعض الحالات وسيلة لتعطيل المركب وتقليل فعاليته، وفي حالات أخرى قد تؤدي إلى تكوين نواتج أكثر نشاطًا أو أكثر سمية.
وتُعد الفروق الوراثية في إنزيمات الأستلة من العوامل المهمة التي تفسر اختلاف استجابة الأفراد لبعض الأدوية، فبعض الأشخاص يمتلكون نمطًا سريعًا للأستلة، في حين يمتلك آخرون نمطًا بطيئًا[11]. وقد يؤثر ذلك في تراكيز بعض الأدوية في الجسم، وفي احتمالية ظهور آثار جانبية. ولهذا تُدرَس الأستلة ضمن
علم الصيدلة الجينية، الذي يهتم بكيفية تأثير الاختلافات الوراثية في الاستجابة الدوائية.
ومن الأمثلة المعروفة على الأستلة الدوائية أستلة بعض الأدوية المحتوية على مجموعات أمينية عطرية أو هيدرازينية. ولا يعني ذلك أن الأستلة وحدها تحدد مصير الدواء، بل تعمل ضمن شبكة واسعة من تفاعلات الاستقلاب، تشمل: الأكسدة والاختزال والتحلل المائي والاقتران مع مجموعات كيميائية أخرى.
الأستلة في الأمراض
تشارك الأستلة في عدد كبير من العمليات المرضية عندما يختل تنظيمها، ففي السرطان، قد تؤدي التغيرات في إنزيمات أستلة الهستونات أو نزع أستلتها إلى اضطراب
التعبير الجيني، وهو ما يؤثر في نمو الخلايا وانقسامها وموتها المبرمج. وقد وُجد أن بعض الأورام تُظهر أنماطًا غير طبيعية من أستلة الهستونات أو من نشاط نازعات الأستلة، ولذلك طُورت مثبطات لبعض نازعات الأستلة واستُخدمت في علاج أنواع معينة من السرطان.[12]
يمكن أن تؤثر الأستلة في الأمراض الالتهابية من خلال تعديل النشاط في عوامل النسخ المنظمة للاستجابة المناعية. كذلك قد تسهم في ضبط إنتاج
السيتوكينات والمعلمات الالتهابية. أما في الأمراض العصبية والتنكسية، فقد ترتبط الأستلة بتنظيم التعبير الجيني العصبي، وبثبات البروتينات، وبالتوازن بين الطي البروتيني الطبيعي والتجمعات البروتينية غير الطبيعية.[13]
وتظهر أهمية الأستلة أيضًا في الأمراض الاستقلابية، فالأستلة في الميتوكوندريا قد تؤثر في نشاط إنزيمات مركزية في إنتاج الطاقة، وقد ترتبط بتغيرات ناتجة عن فرط التغذية أو الإجهاد التأكسدي أو الشيخوخة. ومع ذلك، ينبغي التعامل مع هذه العلاقات بحذر، إذ إن الأستلة قد تكون سببًا مباشرًا في بعض الحالات، وقد تكون نتيجة لتغيرات خلوية أوسع في حالات أخرى.
الأستلة بوصفها هدفًا دوائيًا
أدت أهمية الأستلة في تنظيم الجينات والبروتينات إلى ظهور مجال دوائي يركز على إنزيمات الأستلة ونزعها. ومن أبرز الأمثلة
مثبطات نازعات أستلة الهستونات (HDAC Inhibitors)، وهي مركبات تزيد مستوى الأستلة في بعض البروتينات، وقد تؤثر في التعبير الجيني ومسارات موت الخلية وتمايزها. وقد استُخدمت بعض هذه المثبطات في علاج أنواع محددة من الأورام، مثل الڤورينوستات (Vorinostst)، والروميليديسبين (Romidepsin)، والبيلينوستات (Belinostat)، والبانوبينوستات (Panobinostat)، كذلك تُدرس في أمراض أخرى كالالتهابات والتنكسات العصبية وهي مازالت في طور البحث السريري[14].
ولا يقتصر الاهتمام الدوائي على نازعات الأستلة، بل يشمل: أيضًا ناقلات الأسيتيل والبروتينات القارئة لعلامات الأستلة، فبعض البروتينات تمتلك مجالات بنيوية متخصصة تتعرف على بقايا ليسين المؤستلة، مثل مجالات البرومو[15]. وتُعد هذه المجالات جزءًا من نظام أوسع يُعرف أحيانًا بلغة التعديلات فوق الجينية، إذ توجد إنزيمات "كاتبة" تضيف العلامة، وإنزيمات "ماسحة" تزيلها، وبروتينات قارئة تتعرف عليها وتحولها إلى استجابة وظيفية.
ومن التحديات الكبرى في هذا المجال تحقيق الانتقائية الدوائية، لأن إنزيمات الأستلة ونزعها تشارك في مسارات كثيرة، وقد يؤدي تثبيطها الواسع إلى آثار غير مرغوبة. لذلك يتجه البحث الحديث إلى تطوير مثبطات أكثر تخصصًا، وفهم السياق الخلوي والمرضي الذي يجعل استهداف مسار معين أكثر فعالية وأمانًا.
طرائق دراستها
تُدرس الأستلة باستخدام مجموعة من الطرائق الكيميائية والحيوية والجزيئية. وتُعد مطيافية الكتلة من أهم التقنيات الحديثة للكشف عن مواضع الأستلة في البروتينات على نطاق واسع، فمن خلالها يمكن تحديد البروتينات المؤستلة، ومعرفة بقايا ليسين المعدلة، ومقارنة مستويات الأستلة بين حالات خلوية مختلفة.
كذلك تُستخدم الأجسام المضادة المتخصصة التي تتعرف على ليسين المؤستل، سواء في تقنيات
اللطخة الغربية أو
الترسيب المناعي أو دراسة الكروماتين. وفي حالة أستلة الهستونات، تُستخدم تقنيات مثل الترسيب المناعي للكروماتين متبوعًا بالتسلسل الجيني لدراسة توزيع علامات الأستلة على الجينوم وعلاقتها بالتعبير الجيني.
وتساعد الدراسات البنيوية، مثل: البلورة بالأشعة السينية والرنين المغناطيسي النووي والمجهر الإلكتروني فائق البرودة، في فهم كيفية تأثير الأستلة في شكل البروتين وتآثراته[16]. كذلك تُستخدم المحاكاة الجزيئية والنمذجة الحاسوبية لتفسير أثر الأستلة في الشحنة والاستقرار والحركة الجزيئية.[17]
الأهمية البحثية والتطبيقية للأستلة
تمثل الأستلة محورًا مهمًا في الكيمياء الحيوية الحديثة، لأنها تربط بين البنية الجزيئية، وتنظيم التعبير الجيني، والحالة الأيضية للخلية. ويظهر أثرها بوضوح في تعديل نشاط البروتينات، وتنظيم انفتاح الكروماتين، والتحكم في مسارات الاستقلاب والاستجابة الخلوية للإجهاد. كذلك فإن اضطراب توازن الأستلة ونزعها يرتبط بعدد من الأمراض، ولا سيما السرطان والالتهاب والاضطرابات الاستقلابية والعصبية، وهو ما جعل الإنزيمات المسؤولة عنها أهدافًا واعدة في تطوير الأدوية.
المراجع
Aboalroub, Adam A., et al. "Acetyl Group Coordinated Progression Through the Catalytic Cycle of an Arylalkylamine N-Acetyltransferase." PLOS ONE, vol. 12, no. 5 (2017).
Aboalroub, Adam A., et al. "Backbone Resonance Assignment of an Insect Arylalkylamine N-Acetyltransferase from Bombyx mori Reveals Conformational Heterogeneity." Biomolecular NMR Assignments, vol. 11, no. 1 (2017): pp. 105–109.
Aboalroub, Adam A., & Khaldun M. Al Azzam. "Protein S-Nitrosylation: A Chemical Modification with Ubiquitous Biological Activities." The Protein Journal, vol. 43, no. 4 (2024): pp. 639–655.
Aboalroub, Adam A. "Pathogenic Proteins Through the Lens of NMR Spectroscopy: Structural and Functional Insights into Disease." Cell Biochemistry and Biophysics, vol. 83, no. 4 (2025): pp. 4343–4366.
Aboalroub, Adam A., "Virtual Screening and Molecular Docking Characterization of Isoxazole-Based Small Molecules as Potential Hsp90 Inhibitors: An in Silico Insight." Medinformatics, vol. 2, no. 3 (2025): pp. 154–166.
Allis, C. David, & Thomas Jenuwein. "The Molecular Hallmarks of Epigenetic Control." Nature Reviews Genetics, vol. 17 (2016): pp. 487–500.
Butcher, N. J., et al. "Pharmacogenetics of the Arylamine N-Acetyltransferases." The Pharmacogenomics Journal, vol. 2, no. 1 (2002): pp. 30–42.
Choudhary, Chunaram, et al. "The Growing Landscape of Lysine Acetylation Links Metabolism and Cell Signalling." Nature Reviews Molecular Cell Biology, vol. 15 (2014): pp. 536–550.
Drazic, Adrian, et al. "The World of Protein Acetylation." Biochimica et Biophysica Acta (BBA) – Proteins and Proteomics, vol. 1864, no. 10 (2016).
Haberland, Michael, Rusty L. Montgomer, & Eric N. Olson. "The Many Roles of Histone Deacetylases in Development and Physiology: Implications for Disease and Therapy." Nature Reviews Genetics, vol. 10, no. 1 (2009): pp. 32–42.
Kouzarides, Tony. "Chromatin Modifications and Their Function." Cell, vol. 128, no. 4 (2007): pp. 693–705.
Marmorstein, Ronen, & Ming-Ming Zhou. "Writers and Readers of Histone Acetylation: Structure, Mechanism, and Inhibition." Cold Spring Harbor Perspectives in Biology, vol. 6, no. 7 (2014): a018762.
Narita, Takeo, Brian T. Weinert, & Chunaram Choudhary. "Functions and Mechanisms of Non-Histone Protein Acetylation." Nature Reviews Molecular Cell Biology, vol. 20 (2019): pp. 156–174.
Seto, Edward, & Minoru Yoshida. "Erasers of Histone Acetylation: The Histone Deacetylase Enzymes." Cold Spring Harbor Perspectives in Biology, vol. 6, no. 4 (2014).
Sim, Edith, Areej Abuhammad, & Ali Ryan. "Arylamine N-Acetyltransferases: From Drug Metabolism and Pharmacogenetics to Drug Discovery." British Journal of Pharmacology, vol. 171, no. 11 (2014): pp. 2705–2725.
Verdin, Eric, & Melanie Ott. "50 Years of Protein Acetylation: From Gene Regulation to Epigenetics, Metabolism and Beyond." Nature Reviews Molecular Cell Biology, vol. 16 (2015): pp. 258–264.
[1] Eric Verdin & Melanie Ott, “50 Years of Protein Acetylation: From Gene Regulation to Epigenetics, Metabolism and Beyond,”
Nature Reviews Molecular Cell Biology, vol. 16 (2015), pp. 258–264.
[2] Adam A. Aboalroub & Khaldun M. Al Azzam, “Protein S-Nitrosylation: A Chemical Modification with Ubiquitous Biological Activities,”
The Protein Journal, vol. 43, no. 4 (2024), pp. 639–655.
[3] Adam A. Aboalroub et al., “Acetyl Group Coordinated Progression Through the Catalytic Cycle of an Arylalkylamine N-Acetyltransferase,”
PLOS ONE, vol. 12, no. 5 (2017).
[4] Seto, Edward & Minoru Yoshida. “Erasers of Histone Acetylation: The Histone Deacetylase Enzymes.” Cold Spring Harbor Perspectives in Biology. vol. 6, no. 4 (2014), pp. a018713.
[5] Adrian Drazic et al., “The World of Protein Acetylation,”
Biochimica et Biophysica Acta (BBA) - Proteins and Proteomics, vol. 1864, no. 10 (2016).
[6] Takeo Narita, Brian T. Weinert & Chunaram Choudhary, “Functions and Mechanisms of Non-Histone Protein Acetylation,”
Nature Reviews Molecular Cell Biology, vol. 20 (2019), pp. 156–174.
[7] Tony Kouzarides, “Chromatin Modifications and Their Function,”
Cell, vol. 128, no. 4 (2007), pp. 693–705.
[8] C. David Allis & Thomas Jenuwein, “The Molecular Hallmarks of Epigenetic Control,”
Nature Reviews Genetics, vol. 17 (2016), pp. 487–500.
[9] Chunaram Choudhary et al., “The Growing Landscape of Lysine Acetylation Links Metabolism and Cell Signalling,”
Nature Reviews Molecular Cell Biology, vol. 15 (2014), pp. 536–550.
[10] Edith Sim, Areej Abuhammad & Ali Ryan, “Arylamine N-Acetyltransferases: From Drug Metabolism and Pharmacogenetics to Drug Discovery,”
British Journal of Pharmacology, vol. 171, no. 11 (2014), pp. 2705–2725.
[11] N. J. Butcher et al., “Pharmacogenetics of the Arylamine N-Acetyltransferases,”
The Pharmacogenomics Journal, vol. 2, no. 1 (2002), pp. 30–42.
[12] Michael Haberland, Rusty L. Montgomer & Eric N. Olson, “The Many Roles of Histone Deacetylases in Development and Physiology: Implications for Disease and Therapy,”
Nature Reviews Genetics, vol. 10, no. 1 (2009), pp. 32–42.
[13] Adam A. Aboalroub, “Pathogenic Proteins Through the Lens of NMR Spectroscopy: Structural and Functional Insights into Disease,”
Cell Biochemistry and Biophysics, vol. 83, no. 4 (2025), pp. 4343–4366.
[14] Haberland,
op.cit.
[15] Ronen Marmorstein & Ming-Ming Zhou, “Writers and Readers of Histone Acetylation: Structure, Mechanism, and Inhibition,”
Cold Spring Harbor Perspectives in Biology, vol. 6, no. 7 (2014), a018762.
[16] Adam A. Aboalroub et al., “Backbone Resonance Assignment of an Insect Arylalkylamine N-Acetyltransferase from
Bombyx mori Reveals Conformational Heterogeneity,”
Biomolecular NMR Assignments, vol. 11, no. 1 (2017), pp. 105–109.
[17] Adam A. Aboalroub, “Virtual Screening and Molecular Docking Characterization of Isoxazole-Based Small Molecules as Potential Hsp90 Inhibitors: An in Silico Insight,”
Medinformatics, vol. 2, no. 3 (2025), pp. 154–166.
